
Содержание статьи
Подвижные выросты показывают, как Asgard-археи могли приблизиться к эукариотической клетке
Полезные материалы
01.10.2026
01.10.2026
12
мин
У двух современных Asgard-архей тонкие мембранные выросты оказались динамическими структурами: они растут, ветвятся, сокращаются, участвуют в перемещении клеточного тела. В отличие от прежних снимков фиксированных клеток, работа напрямую показывает динамику выростов и поверхностное движение; участие локиактина поддерживают окрашивание и фармакологические опыты, но причинный механизм пока не подтвержден генетически.
Для происхождения эукариот результат имеет ограниченное, но содержательное значение. Он делает биофизически правдоподобнее сценарии, в которых архейный хозяин мог активно менять форму, поддерживать тесный контакт с бактериальным партнером и перемещаться в осадке. Но работа не показывает поглощение бактерии, появление митохондрии или сам исторический переход к эукариотической клетке.
Что исследовали авторы
Основная работа Филиппа Радлера, Тобиаса Фибёка, Цзэнь-Хао Ло и коллег опубликована в Nature 30 сентября 2026 года. Это рецензированная экспериментальная статья с открытым доступом на сайте издателя: DOI статьи и страница Nature.
В работе изучали два культивируемых представителя разных линий Asgard:
- Candidatus Lokiarchaeum ossiferum из Lokiarchaea;
- Candidatus Margulisarchaeum peptidophilum из Hodarchaeales.
Клетки наблюдали в бескислородных проточных камерах методом фазово-контрастной и дифференциально-интерференционной микроскопии. Короткие эксперименты продолжались до 30 минут, более длительные — до 6 часов. Скорость роста и сокращения выростов определяли по кимограммам, а перемещение клеточного тела отслеживали с помощью TrackMate.
Это не наблюдение изолированных чистых культур. L. ossiferum изучали в обогащенной культуре, где доля археи составляла 20–60%. M. peptidophilum выращивали в стабильной совместной культуре с метаногеном Methanocalculus sp. MC2 в соотношении примерно 70:30. Кроме того, в анализ поведения включали только клетки, прикрепившиеся к стеклу. Авторы прямо уточняют: «In this study, we describe the morphology and behaviour of adherent cells only, not including those that remained in the supernatant». Поэтому результаты относятся прежде всего к поверхностной подвижности в лабораторной камере.
Как двигались клетки
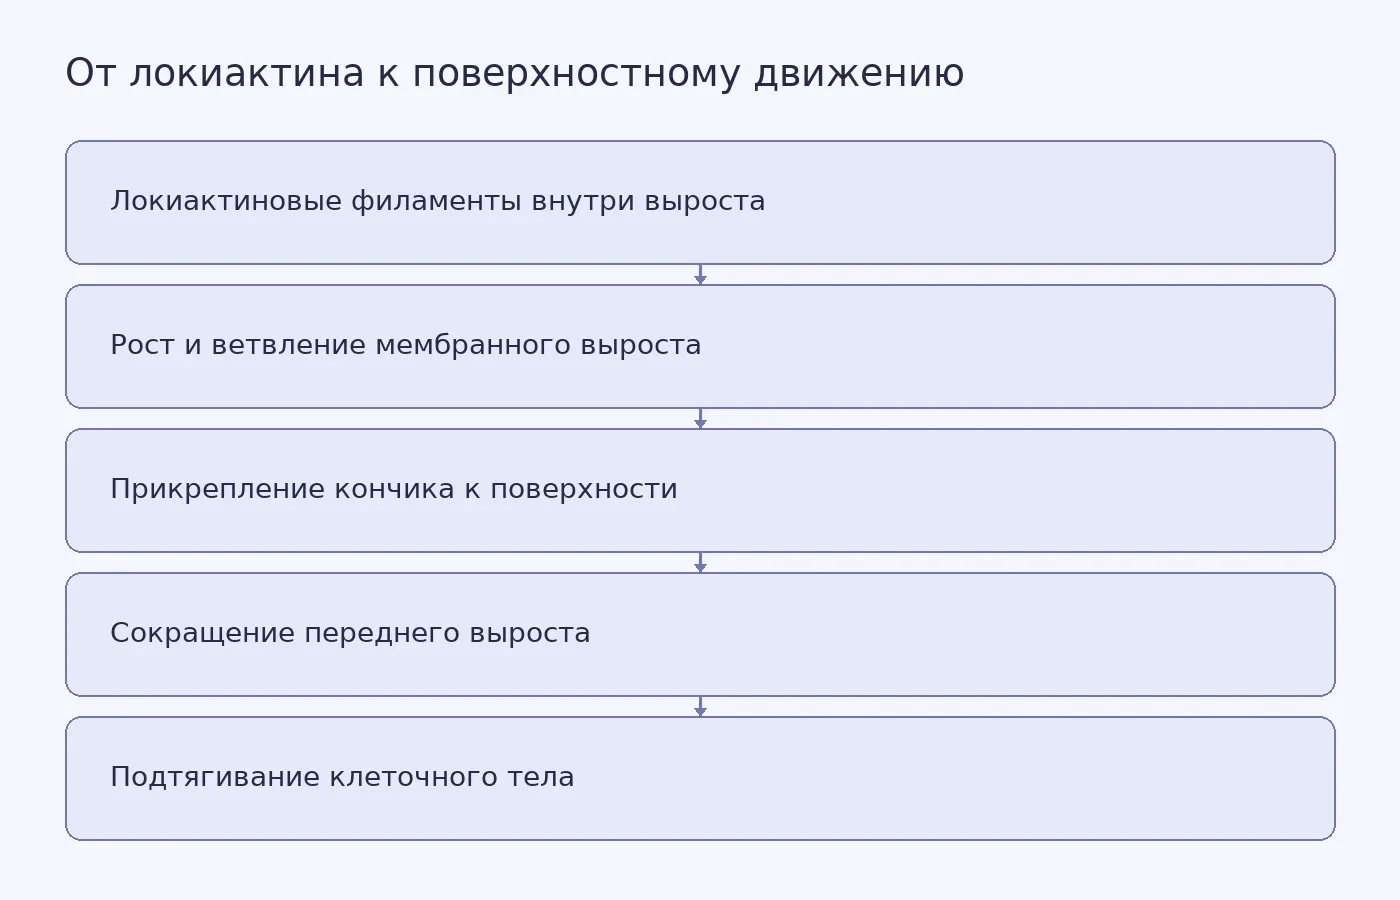
У прикрепленных клеток L. ossiferum находили в среднем около пяти выростов длиной примерно 3,5 мкм; отдельные структуры достигали 15 мкм. Выросты ветвились, удлинялись и затем сокращались. Средняя скорость роста составляла 1,5 ± 0,6 мкм в минуту. Сокращение происходило в двух режимах: медленном — 2,0 ± 0,7 мкм в минуту — и быстром, до 11,4 ± 6,1 мкм в минуту. Для оценки роста и сокращения авторы проанализировали 115 выростов в 28 экспериментах с 13 культурами.
Двигалось и центральное тело клетки. В наборе отслеженных клеток медианная скорость составляла 1,57 ± 0,93 мкм в минуту. Однако большинство траекторий были извилистыми: клетки часто меняли направление. Устойчивое движение в одну сторону обнаружили только у 6 из 117 клеток. Поэтому эксперимент не дает оснований говорить о направленном поиске симбиотического партнера.
Микроскопические наблюдения согласовались с двумя механическими режимами. В первом передний вырост прикреплялся к поверхности, сокращался, и клеточное тело подтягивалось вперед. Во втором тело плавно скользило вслед за выростом. Признаков того, что задние выросты главным образом толкают клетку, было мало. Направление движения чаще определяли передние выросты.
У M. peptidophilum выросты росли быстрее — 4,8 ± 1,4 мкм в минуту, — а клеточное тело перемещалось со скоростью 3,4 ± 1,2 мкм в минуту. Сходство поведения у двух эволюционно разнесенных линий уменьшает вероятность того, что наблюдение объясняется особенностями одного штамма. Но двух видов недостаточно, чтобы считать такое ползание универсальным свойством всех Asgard-архей.
Почему движение связывают с локиактином
Предыдущая работа Тиаго Родригеша-Оливейры и коллег дала структурную основу для этой интерпретации. В клетках L. ossiferum криоэлектронная томография выявила протяженные двухцепочечные филаменты в теле и выростах. Их архитектура была совместима с F-актином, а иммунное окрашивание указывало на локиактин — архейный гомолог актина. Работа опубликована в Nature: https://doi.org/10.1038/s41586-022-05550-y.
Новая статья добавляет к этой статической картине наблюдение функции. В пользу связи с локиактином авторы приводят несколько независимых признаков:
- актиноподобные филаменты обнаруживаются внутри выростов;
- в живых клетках выросты быстро перестраиваются;
- их расположение согласуется с направлением перемещения тела;
- изменение сцепления клетки со стеклом одновременно меняет динамику выростов и скорость движения;
- часть препаратов, нарушающих динамику эукариотического актина, подавляет образование выростов и миграцию.
Наиболее подробно исследовали Swinholide A. При концентрациях от 50 нг/мл препарат останавливал появление и рост новых выростов L. ossiferum, уменьшал их число и лишал клетки способности перемещаться. У M. peptidophilum он сокращал длину выростов, блокировал перестройку формы и подавлял движение.
Коиммунопреципитация с масс-спектрометрией выявила совместное обогащение локиактина с одним профилином, пятью гомологами гельзолина и ARF-GTPase. Это подходящие кандидаты на регуляторы сборки цитоскелета и деформации мембраны. Но совместное выделение еще не доказывает прямое взаимодействие белков и не показывает, какая именно реакция запускает рост конкретного выроста.
Насколько строг вывод о причинности
На уровне клеточного феномена вывод выглядит убедительно: структура, динамика, направление движения и чувствительность к ингибиторам согласуются с ролью локиактинового цитоскелета. Однако это не генетическое доказательство причинности.
У Asgard-архей пока нет необходимых генетических инструментов и флуоресцентных белковых слияний. В статье прямо сказано: «In the absence of genetic tools and fluorescent fusion proteins, we first tried to visualize Lokiactin with fluorescent stains developed for eukaryotic actin». Исследователи не выключали ген локиактина и не проверяли мутантные варианты отдельных регуляторов.
Кроме того, ингибиторы разработаны для эукариотического актина. Их различное действие может объясняться не только специфическим связыванием с локиактином, но и отличиями в последовательности белка, строении филаментов или проницаемости клеточной оболочки. Авторы формулируют вывод осторожно: «Together, these inhibitor experiments suggest that protrusion dynamics and movement of cells are dependent on Lokiactin filaments».
Не вполне нейтральным оказался и краситель FastAct. После окрашивания скорость роста выростов снизилась до 0,72 ± 0,49 мкм в минуту. Значит, сам способ визуализации мог менять измеряемый процесс.
Коиммунопреципитация также имеет ограничение: она показывает совместное обогащение белков после фиксации и выделения, но не устанавливает молекулярную последовательность событий. Для следующего этапа нужны биохимические эксперименты с очищенными компонентами, генетическое подавление локиактина, профилинов и гельзолинов, а также восстановление движения после возврата нормальной копии гена.
Что это добавляет к эукариогенезу
До этой работы существовала разрозненная цепочка свидетельств: в геномах Asgard-архей находили эукариотоподобные белки, в пробирке отдельные регуляторы влияли на актин, а в фиксированных клетках были видны сложные выросты. Оставалось неясно, работает ли такая система в целой живой клетке.
Теперь показано, что по крайней мере две современные Asgard-археи способны активно перераспределять мембрану, удлинять и сокращать выросты, сцепляться с поверхностью и перемещать клеточное тело. Это делает правдоподобнее существование активной мембранно-цитоскелетной механики у древних родственников эукариот.
Такой аппарат мог увеличивать площадь контакта с окружающей средой, помогать перемещаться в порах осадка, удерживать соприкосновение с другими микроорганизмами или менять геометрию поверхности. Но это условные биофизические функции, а не события, наблюдавшиеся в эксперименте.
Предыдущая структурная работа связывала разветвленные выросты с гипотезами постепенного приобретения митохондрии через тесные контакты с бактериальным партнером. Живая микроскопия усиливает механическую часть этой идеи: выросты действительно способны менять форму клетки и участвовать в ее перемещении.
Однако между этим наблюдением и происхождением митохондрии остаются непроверенные этапы: распознавание партнера, устойчивое сцепление, обмен метаболитами, обволакивание бактерии, переход к внутриклеточному симбиозу и наследование симбионта при делении. В основной работе не наблюдали ни одного из них.
Почему филогенетический контекст здесь важен
Нельзя считать M. peptidophilum прямым портретом ближайшего предка эукариот только потому, что Hodarchaeales ранее предлагались как сестринская линия эукариот.
В работе Цзявэя Чжана и коллег, опубликованной в Nature в 2025 году, использовали 223 новых почти полных метагеномных генома Asgard-архей и расширенную выборку маркерных белков. Авторы получили положение эукариот вне Heimdallarchaeia, как сестринской группы к этой линии, а не рядом с Hodarchaeales внутри Heimdallarchaeia. Статья: https://doi.org/10.1038/s41586-025-08955-7.
Эта реконструкция тоже не окончательна: результаты зависят от набора маркеров, моделей эволюции, удаления быстро меняющихся позиций и качества метагеномных сборок. Но ее значение для данной темы очевидно: клеточная механика современного организма и положение его линии на филогенетическом дереве — разные виды свидетельств. Подвижность M. peptidophilum не устанавливает, какими были клетки непосредственного предка эукариот.
Что работа не доказывает
- Поглощение бактерии. Не наблюдались охватывание, эндоцитоз или помещение бактериального партнера внутрь архейной клетки.
- Направленное движение к партнеру. Большинство траекторий были случайными; устойчивое однонаправленное движение у L. ossiferum обнаружили лишь у 6 из 117 отслеженных клеток.
- Обмен веществ через выросты. Не показаны передача питательных веществ или образование длительного межклеточного соединения.
- Состояние древнего предка. Изучены современные организмы, отделенные от предполагаемого предка эукариот примерно двумя миллиардами лет эволюции.
- Универсальность механизма. Исследованы только две линии, причем в смешанных или совместных культурах.
- Конкретную модель эукариогенеза. Наблюдение не выбирает между inside-out, engulfment, reverse-flow и другими сценариями.
Вывод
Основной результат работы можно сформулировать узко и надежно: у двух современных Asgard-архей живые мембранные выросты динамичны, участвуют в поверхностном ползании, а это поведение согласуется с работой локиактинового цитоскелета.
Исторический вывод слабее. Исследование делает активную мембранно-цитоскелетную механику до возникновения эукариот физически правдоподобнее, но не показывает происхождение митохондрии и не реконструирует единственную последовательность событий. Следующий решающий шаг — наблюдать Asgard-архей в присутствии потенциальных партнеров в условиях, приближенных к пористому морскому осадку, и измерить, могут ли выросты направленно реагировать на химические сигналы, формировать устойчивые контакты и обеспечивать обмен веществ.
Источники
- Radler P., Viehboeck T., Luo Z.-H. et al. Dynamic protrusions mediate crawling motility in Asgard archaea. Nature, 2026. https://doi.org/10.1038/s41586-026-11063-9. Рецензированная оригинальная статья, открытый доступ на сайте издателя.
- Rodrigues-Oliveira T., Wollweber F., Ponce-Toledo R. I. et al. Actin cytoskeleton and complex cell architecture in an Asgard archaeon. Nature 613, 332–339 (2023). https://doi.org/10.1038/s41586-022-05550-y. Рецензированная оригинальная статья, открытый доступ.
- Zhang J., Feng X., Li M. et al. Deep origin of eukaryotes outside Heimdallarchaeia within Asgardarchaeota. Nature 642, 990–998 (2025). https://doi.org/10.1038/s41586-025-08955-7. Рецензированная оригинальная статья, открытый доступ.


Похожие статьи
 Полезные материалы
11
мин
04.03.2026
1
Анализ учебных данных с помощью смартфона: cписок процессов и инструментов
Чтобы фиксировать процесс обучения, студенту нужно учитывать расписание занятий, сроки выполнения, рассчитывать уровень концентрации, посещаемость занятий и продуктивность их проработки. Исключить предвзятую субъективную оценку о продуктивности работы помогут специальные инструменты-планировщики.
 Полезные материалы
18
мин
01.10.2026
Что на самом деле измеряют бенчмарки ИИ: конвергентная и дискриминантная валидность против посторонних навыков
Вопрос о том, измеряет ли бенчмарк предвзятость и безопасность модели или посторонний навык вроде понимания текста, в 2026 году перестал быть риторическим. Две работы переносят в оценку ИИ аппарат психометрики — науки об измерении человеческих способностей, — и показывают, что часть популярных тесто
 Полезные материалы
11
мин
02.10.2026
Повседневные практики безопасности в классе при продолжающемся стрессе: что предлагают источники и чего они не доказывают
Вопрос, который здесь разбирается, звучит так: какие повседневные действия учителя поддерживают у детей ощущение безопасности при продолжающемся стрессе — и где проходит граница, за которой педагог начинает подменять психологическую помощь? Короткий ответ по доступным материалам: источники предлагаю
 Полезные материалы
13
мин
03.10.2026
Когда узкий список инструментов помогает ИИ-агенту выбирать точнее
Пользователь просит ИИ-агента определить, какие устройства сейчас находятся в корпоративной сети. Роутер не находит подходящего раздела и не передаёт модели ни одного инструмента. Агент не сообщает об ограничении, а пишет: «Выполняю сканирование сети…» Затем он описывает работу, которой в действител
Последние новости и статьи
 Наука
4
мин
03.10.2026
FDA одобрила сердечный клапан, который можно расширять по мере роста ребёнка
Управление по санитарному надзору за качеством пищевых продуктов и медикаментов США (FDA) 1 октября 2026 года одобрило Autus Size-Adjustable Valve. Об этом 2 октября сообщил HealthDay в материале, опубликованном Medical Xpress. По данным публикации, это первый сердечный клапан, рассчитанный на расши
 Наука
5
мин
03.10.2026
Рентгеновская «съёмка» показала, как азобензол меняет форму за пикосекунды
Молекула азобензола меняет форму не так, как считали почти полвека. Команда Хётчхоля Ихэ из Корейского института передовых технологий (KAIST) и Центра передовых исследований реакционной динамики при Институте фундаментальных наук (IBS) проследила за ней в растворе метанола с фемтосекундным разрешени
 Полезные материалы
16
мин
03.10.2026
Метакогниция на уроке: короткие приёмы, которые помогают школьникам замечать свою учёбу
Учитель объясняет тему, ученики кивают, домашнее задание сделано, а на контрольной выясняется, что половина класса не поняла главного. Знакомая картина, и она не обязательно говорит о слабой подготовке. Часто дело в другом: школьники не умеют замечать, что именно они делают, когда учатся, и не прове
 Наука
3
мин
03.10.2026
CarboTaxol в день противораковой вакцинации усилил ответ T-клеток в доклинических моделях
Исследователи Оксфордского отделения Института исследований рака Людвига обнаружили, что противораковая вакцина сильнее действовала в нескольких доклинических моделях, если CarboTaxol вводили в тот же день. Когда химиотерапию и вакцинацию разделяли несколько дней, усиление исчезало. О результатах Ин
 Полезные материалы
11
мин
03.10.2026
Красный свет и метаболизм: что показывают исследования и где кончаются доказательства
Возьмите фонарик на телефоне, включите его и прижмите палец к источнику. Палец светится красным. Это не кровь: так рассеиваются фотоны красного света, которые ищут, где бы им поглотиться. С этого простого наблюдения начинается статья New Scientist, где астрофизик Боб Фосбери говорит: «Свет — это пит
 Полезные материалы
14
мин
03.10.2026
Что каталог из 11 742 глубоководных вирусных геномов говорит о хрупкости морских экосистем
На борту исследовательского судна керн тихоокеанского осадка выглядит почти непримечательно: узкая колонка грунта, разделенная на двухсантиметровые слои. Но именно из таких колонок, собранных в 2023 и 2024 годах, вырос каталог из 11 742 предполагаемых вирусных популяций.Это число нельзя понимать бук