
Содержание статьи
Сенсорная фовеа на кончиках пальцев Pipa pipa: как периферия и тектум выделяют важную поверхность
Полезные материалы
02.10.2026
02.10.2026
13
мин
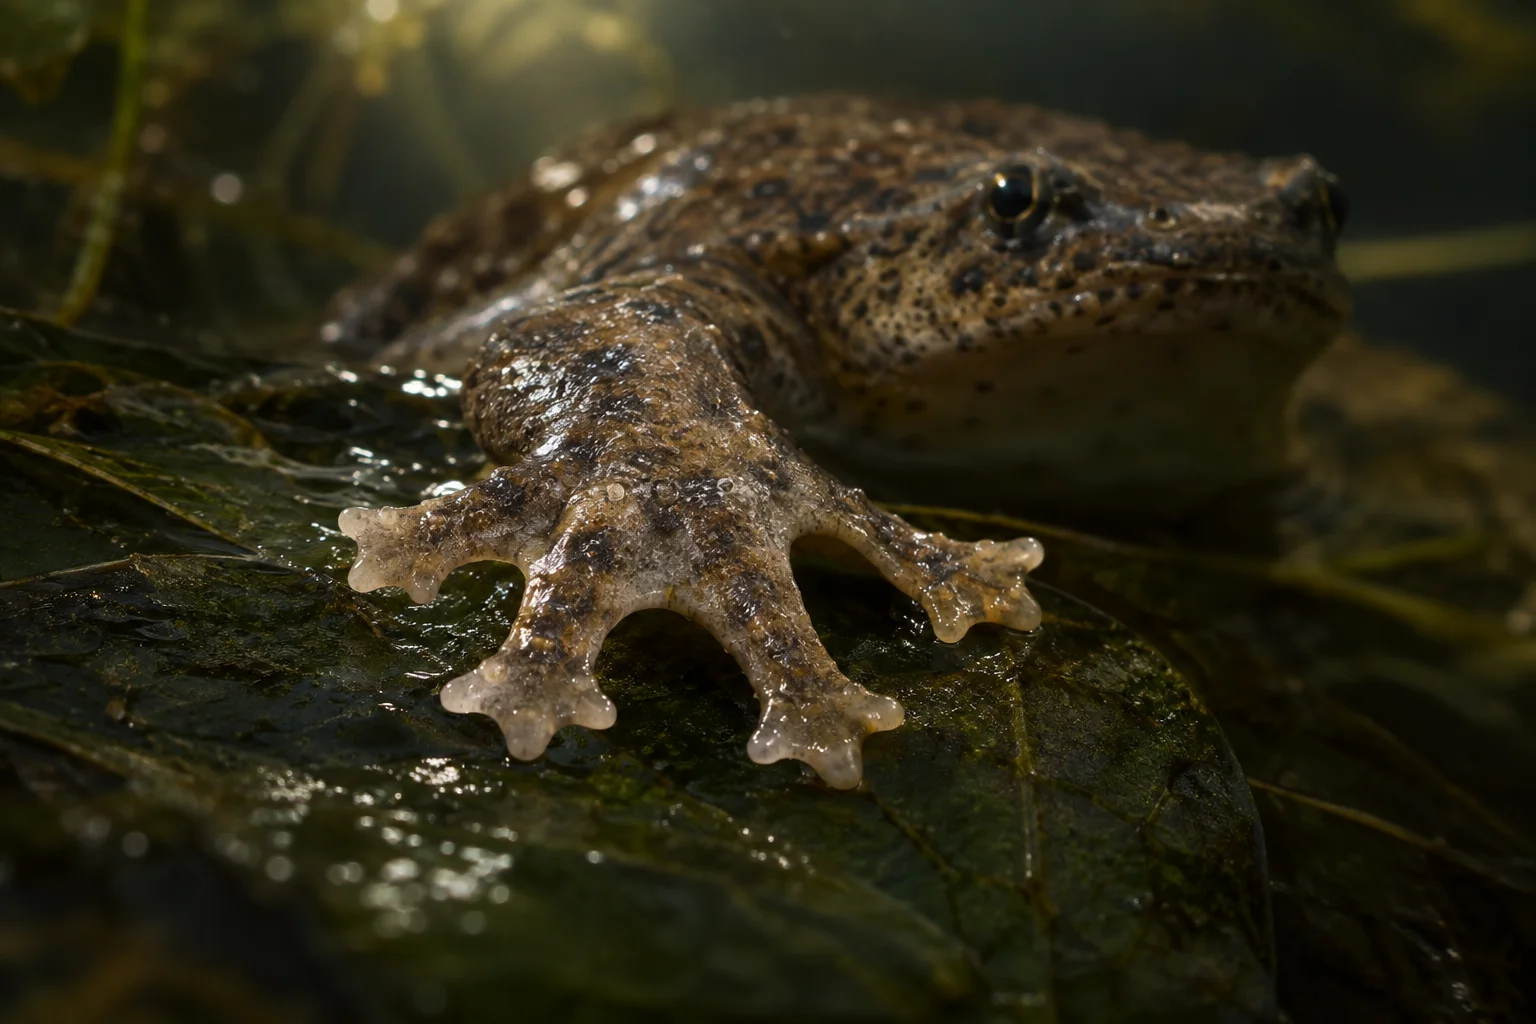
Суринамская жаба Pipa pipa — полностью водная, безъязыкая пипидная лягушка, которая ловит добычу быстрым всасыванием, координируя его передними конечностями. Кончики её пальцев несут характерные лопастные структуры, функция которых до недавнего времени была неизвестна. Работа Meredith, Fuquen, Manfrey, Chai и Leitch (Journal of Comparative Physiology A, опубликована онлайн 10 августа 2026 года, DOI 10.1007/s00359-026-01838-w, открытый доступ, рецензирование: получена 15 февраля 2026, доработана 4 июля 2026, принята 14 июля 2026) объединяет сканирующую электронную микроскопию, пороги по монофиламентам фон Фрея, in vivo электрофизиологию плечевого нерва и оптического тектума и высокоскоростную видеосъёмку. Авторы заключают, что эти структуры удовлетворяют трём критериям «соматосенсорной фовеа» — термину, который они используют строго операционально.
Ниже — разбор того, почему разветвлённые кончики пальцев можно считать сенсорной фовеа и что это говорит о непропорциональном представлении важных сенсорных поверхностей в мозге. Это обзор чужой рецензируемой работы, а не собственное исследование.
Что именно проверяли и на каком материале
Дизайн многоуровневый, и это важно: заявление о «фовеа» опирается не на одну методику, а на согласование морфологии, периферической физиологии, центрального картирования и поведения.
- Морфология. СЭМ кончиков пальцев: 10 пальцев от 2 взрослых и 12 пальцев от 2 ювенильных особей; подсчёт папилл в квадратах 200×200 мкм на четырёх поверхностях, обработка в ImageJ.
- Механическая чувствительность. Калиброванные монофиламенты фон Фрея (0,008–300 мН) у 3 взрослых лягушек, 5 стандартных точек; порог — минимальная сила, дававшая ответ в ≥2 из 3 предъявлений.
- Периферическая иннервация. Внеклеточные записи от плечевого нерва у 6 взрослых лягушек (вольфрамовые микроэлектроды 5–12 МОм, усиление 10 000×, полоса 300 Гц–10 кГц, оцифровка 40 кГц), картирование рецептивных полей, классификация RA/SA, тесты ламинарным потоком воды (2–15 см/с).
- Центральное представительство. Мультиюнитное картирование контралатерального оптического тектума у 2 взрослых и 3 ювенильных лягушек (сетка ~200 мкм, ~120 пенетраций на животное, глубина 200–500 мкм), электролитические метки, тиониновая окраска.
- Поведение. Высокоскоростная съёмка 1000 кадров/с (~50 мкм/пиксель) у 2 взрослых и 5 ювенильных лягушек, 210 кормовых событий (7 лягушек × 10 проб × 3 условия): видимый свет; только инфракрасный свет (850–940 нм, вне спектральной чувствительности фоторецепторов ануран); ИК + хлорид кобальта (0,1 мМ) для блокады боковой линии.
Все процедуры одобрены UCLA IACUC (протокол #ARC 2024-025). Отдельно проведён контроль эффективности кобальта у 2 взрослых лягушек, не использованных в других экспериментах: одновременные записи от афферента поверхностного невромаста дорсального туловища и от афферента кончика пальца.
Три критерия фовеа и что показали данные
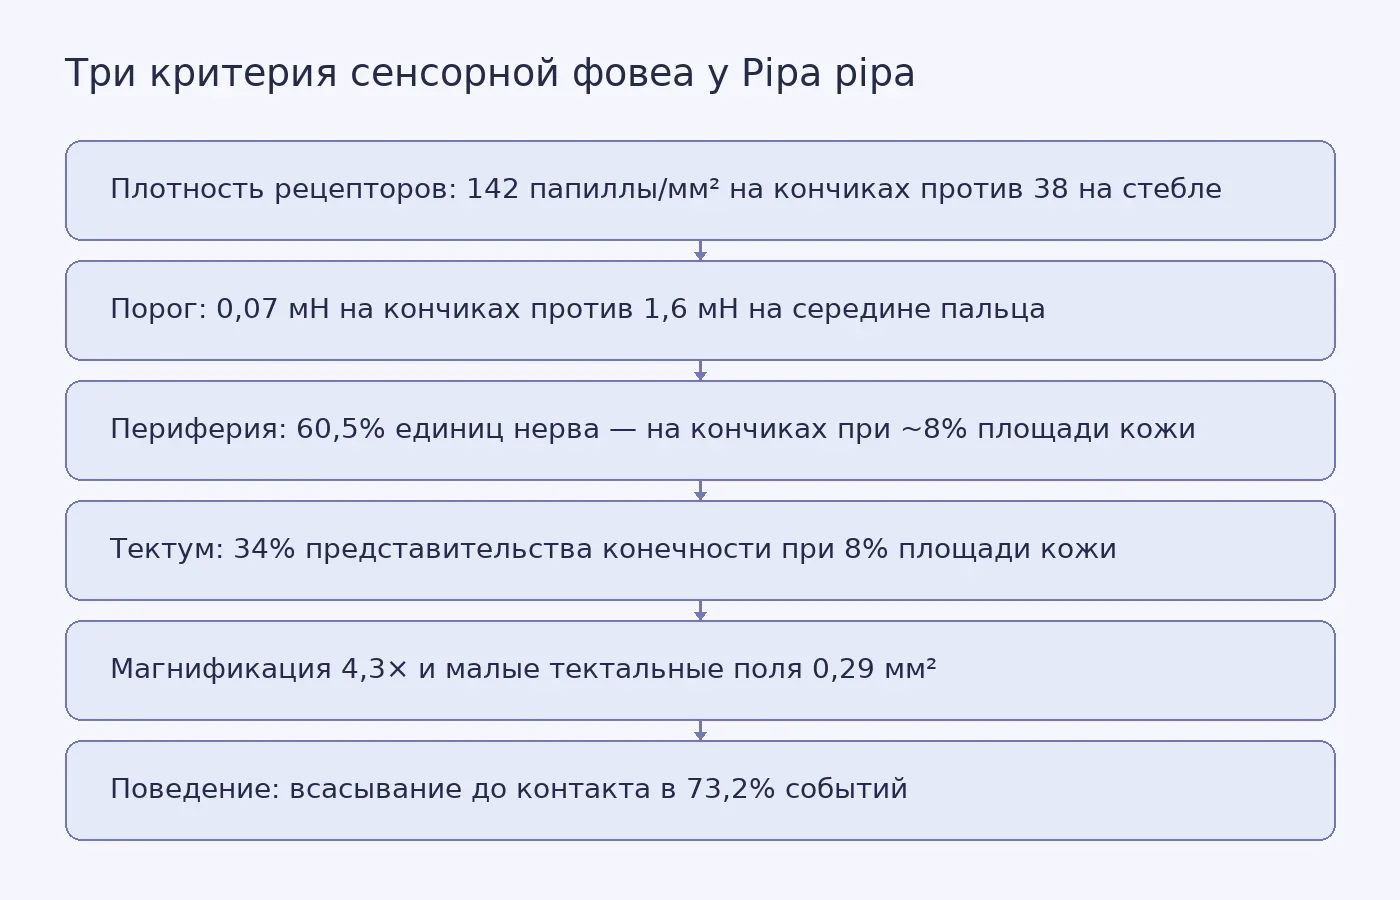
Авторы прямо формулируют рамку: «In each case, three defining features are present: (1) a region of elevated receptor density or innervation, (2) a disproportionately large central representation relative to the sensory surface area, and (3) a sensorimotor strategy that actively repositions the foveal region onto stimuli of interest». Они отличают это от «тактильной магнификации» (только критерий 2) и «тактильной специализации» (только критерий 1).
Критерий 1 — плотность рецепторов. Морфология описывается как прогрессивная квадрификация: «Each primary lobe is further subdivided at its distal extremity into four smaller secondary lobules by shallower sulci (depth: 50–80 μm), yielding 16 lobules per digit, 64 per forelimb, and 128 per frog». Плотность куполообразных папилл на дистальной поверхности лобул — 142 ± 18/мм² против 87 ± 14 (проксимальное основание лобулы), 38 ± 9 (середина пальца) и 14 ± 5 (край межпальцевой перепонки); F(3,92) = 187,4, p < 0,0001. Пороги: медиана 0,07 мН (МКР 0,04–0,16) на дистальных кончиках лобул против 0,4 мН на проксимальном основании, 1,6 мН на середине пальца, 3,2 мН на перепонке и 4,9 мН на метакарпальной подушечке; H = 47,3, p < 0,0001. Корреляция порога с плотностью папилл: ρ = −0,91, p < 0,001.
Критерий 2 — центральное представительство. В тектуме кончики пальцев занимают 34,2 ± 4,1% соматосенсорного представительства конечности при 7,8 ± 0,6% площади кожи; коэффициент магнификации 4,3 ± 0,7 против 0,8 ± 0,2 (стебель), 0,5 ± 0,1 (ладонь), 0,4 ± 0,1 (предплечье); F(3,16) = 38,7, p < 0,0001. Рецептивные поля в тектуме: 0,29 ± 0,11 мм² для кончиков против 1,47 ± 0,52 (стебель), 3,21 ± 1,03 (ладонь), 5,8 ± 2,1 (предплечье); H = 68,3, p < 0,0001. Малые тектальные поля при большом представительстве — это и есть аргумент в пользу более высокого пространственного разрешения на кончиках.
Критерий 3 — сенсомоторная стратегия. Авторы указывают на вынесенную вперёд согнутую позу конечностей в засаде и активное перемещение кистей при захвате, что выставляет кончики пальцев на путь приближающейся добычи. Поведенческие данные согласуются: в 73,2% всех кормовых событий (видимый свет: 78,5%; ИК: 73,8%; ИК + кобальт: 68,4%) рыба ещё не коснулась ни одной поверхности пальца в момент начала всасывания; средняя дистанция рыба–палец в этот момент 4,8 ± 1,9 мм.
Периферия: почему это не просто «много рецепторов»
Записи от плечевого нерва дали 147 изолированных механорецептивных единиц у 6 лягушек. Из них 89 (60,5%) имели рецептивные поля на кончиках пальцев, хотя те занимают лишь около 8% площади поверхности конечности. Большинство единиц кончиков — быстро адаптирующиеся (79,8%), средняя площадь рецептивного поля RA-единиц 0,31 ± 0,14 мм². Часть RA-единиц кончиков (23/71, 32,4%) отвечала на ламинарный поток (порог 2–8 см/с, медиана 4 см/с), тогда как 0/58 единиц стебля пальца и ладони не отвечали ни при какой скорости.
Здесь важна авторская оговорка, которую не стоит сглаживать: «though we acknowledge that the proportional unit count is sensitive to electrode-sampling biases (e.g., toward larger-caliber fibers) and does not by itself establish a fiber count». То есть пропорция 60,5% — это пропорция зарегистрированных единиц, а не подсчёт волокон; смещение выборки электродом не исключено.
Что это говорит о непропорциональном представлении в мозге
Ключевой результат для вопроса читателя — не сама охота на ощупь, а несоответствие между долей кожи и долей нейронного ресурса. Кончики пальцев — 8% поверхности конечности, но 34% тектального представительства конечности. Это и есть смысл «непропорционального представления»: мозг выделяет на поведенчески важную поверхность долю ресурса, намного превышающую её геометрическую долю.
Авторы помещают это в сравнительный ряд: магнификация 4,3× близка к 3–4× для 11-го придатка звездоносого крота в S1, к 3–5× для ретинальной фовеа в V1 приматов и к расширенному корковому представительству акустической фовеа у усатого кита-мышелова (mustached bat). Отсюда — их гипотеза о «сладкой точке» магнификации 3–5×, которую они сами называют спекулятивной: «This is, of course, speculative, with the optimal magnification factor depending on the dimensionality of the sensory surface, the distribution of behaviorally relevant stimuli, and the metabolic cost of neural tissue».
Существенная деталь: у амфибий нет неокортекса, и центральное представительство измерялось в оптическом тектуме — структуре, гомологичной верхнему двухолмию млекопитающих. Авторы подчёркивают, что это расширяет принцип фовеальной организации на структуру, филогенетически более древнюю, чем неокортекс.
Насколько убедительно и где границы
Сильные стороны: согласованность независимых уровней (плотность папилл ↔ пороги ↔ плотность иннервации ↔ тектальная магнификация ↔ поведение), прямой контроль избирательности кобальта (фоновая активность афферента боковой линии 8–18 спайков/с падала до <1 спайка/с через 8–12 мин и восстанавливалась >75% за 30 мин отмывания; ответы плечевого нерва на 0,4 мН и на поток 6 см/с статистически не различались до/во время/после кобальта, парный Уилкоксон, оба p > 0,4).
Ограничения, которые авторы называют сами, и их стоит держать в уме:
- Пропорциональный подсчёт единиц чувствителен к смещению выборки электродом и сам по себе не устанавливает число волокон.
- Магнификация 4,3× — отношение, зависящее от выбора знаменателя: «The magnification factor we report (4.3×) is by construction a ratio, and its numerical value depends on the choice of denominator». При расчёте относительно всей поверхности тела или относительно соседнего стебля пальца абсолютное значение изменится.
- Вклад саккулюса/отолитовых органов не исключён: «we cannot exclude a contributory role for the saccule, and the cleanest experiment would be a saccular or VIIIth-nerve manipulation under IR + cobalt + intact-otolith versus IR + cobalt + otolith-ablated comparison».
- Кожная хеморецепция не исключена: условие ИК + кобальт не изолирует соматосенсорику от кожной хеморецепции; предложены эксперименты с топическим амилоридом.
- Малые выборки в ряде процедур: пороги фон Фрея — 3 лягушки; тектальное картирование — 5 лягушек; поведение — 7 лягушек; контроль кобальта — 2 лягушки.
- Данные пока не поддерживают более тонкое подразделение внутри фовеа (аналог 11-го придатка звездоносого крота); это открытый вопрос.
- Ювенильные особи имеют частично слитые вторичные лобулы и меньшую плотность папилл (94 ± 21/мм²), что указывает на постметаморфозное развитие структуры; часть данных получена на смешанной выборке.
Отдельно стоит отметить семантическое возражение, которое авторы признают: по их строгому трёхкритериальному определению под «сенсорную фовеа» подпадали бы также кисть примата и губы человека. Они считают это свойством рамки, а не ошибкой употребления, и предлагают иерархическое применение понятия (в звездоносом кроте всё «звезда» — фовеа относительно тела, а 11-й придаток — фовеа внутри звезды).
Ещё одно расхождение, которое авторы фиксируют как открытый вопрос: в тектуме Pipa представительство кончиков пальцев относительно равномерно между лопастями, тогда как у звездоносого крота 11-й придаток выделен в S1, но в верхнем двухолмии представлен наравне с другими.
Практический смысл и что остаётся проверить
Работа показывает конкретный, измеримый набор признаков, по которым можно искать сенсорные фовеа у других животных: плотность рецепторов, отношение центрального представительства к площади поверхности и поведенческое перемещение специализированной поверхности к стимулу. Для Pipa pipa эти три признака сходятся на кончиках пальцев, и поведение (всасывание до контакта, в том числе при выключенных зрении и боковой линии) согласуется с их ролью в короткодистанционном обнаружении добычи.
Что остаётся нерешённым: чистый эксперимент с манипуляцией саккулюсом или VIII нервом; изоляция соматосенсорики от кожной хеморецепции; проверка, есть ли внутри фовеа более тонкое подразделение; и вопрос о том, насколько гипотеза «сладкой точки» магнификации 3–5× выдерживает проверку на других системах. Пока это скорее приглашение к дальнейшим экспериментам, чем закрытый вывод.
Источники
- Meredith C.J., Fuquen R.W., Manfrey S., Chai P., Leitch D.B. A somatosensory fovea in the fingertips of the Surinam toad. Journal of Comparative Physiology A, 2026. DOI: 10.1007/s00359-026-01838-w. Полный текст: Springer Nature Link. PDF: link.springer.com/content/pdf/10.1007/s00359-026-01838-w.pdf.
- Рисунок 1 (морфология кончиков пальцев): страница рисунка.
- McMurray C. How the pipa frog hunts prey by touch. The Transmitter, 30 сентября 2026: thetransmitter.org (журналистская заметка, не первичный источник).
- Страница факультета: Duncan Leitch, UCLA Department of Integrative Biology and Physiology.


Похожие статьи
 Полезные материалы
9
мин
27.10.2022
26758
Актуальность дипломной работы
Актуальность исследования дипломной работы – это аргументированное обоснование основных причин выбора темы проекта и доказательство остроты/злободневности поднятых проблем в определенной научной отрасли. Актуальность дипломной работы описывается в разделе «Введение» и необходима в
 Полезные материалы
9
мин
13.01.2023
21455
Как писать конспекты
Много студентов задаются вопросом о том, нужно ли писать конспекты и так ли это необходимо. Конспектирование материалов лекций – не только необходимость в угоду преподавателя, но и возможность качественно систематизировать знания, запомнив самую важную информацию по изучаемой теме. К
 Полезные материалы
11
мин
27.02.2026
1
Как защитить научную работу от кражи и плагиата
Проблема цифровой кражи научных работ и присвоения чужих результатов как своих собственных остается острой из-за открытого доступа к огромным информационным массивам. Чтобы избежать этой распространенной проблемы, предлагаем воспользоваться практическими рекомендациями, приведенными в этом материале
 Полезные материалы
13
мин
04.03.2026
1
Экологичный подход к учебе: как учёба может быть zero-waste
Чтобы сохранить энергию и снизить перегрузку, необходимо грамотно подойти к распределению времени, сконцентрировавшись на важных моментах, приносящих результат. Экологичный подход к учебе поможет эффективнее относиться к собственным и внешним ресурсам, акцентируясь на практической ценности затраченн
 Полезные материалы
12
мин
21.09.2026
1
Как работать над дипломом без данных предприятия
Из-за отсутствия данных конкретного предприятия, у дипломантов часто возникают проблемы с практической частью диплома. Нехватка фактических финансовых показателей, внутренней отчетности, результатов опросов сотрудников или актуальной информации о производственных процессах – это распространенн
 Полезные материалы
12
мин
21.09.2026
1
Доработка дипломной работы: с чего начать и что лучше заказать
Если дипломная работа уже частично выполнена, необязательно тратить дополнительное время на разделы, которые сложно выполнить самостоятельно. Иногда достаточно обратиться к специалистам за помощью с конкретными частями работы: например, отдельная глава, практическая часть, литературный обзор и т.д.
Последние новости и статьи
 Полезные материалы
9
мин
02.10.2026
Молекулярные «клеи» против рака: как сближение белков открывает «неприступные» мишени
В сентябре 2026 года в Chemistry World вышла авторская колонка редактора по бизнесу Филлипа Бродвита, посвящённая двум одобренным в США препаратам, которые работают не как классические ингибиторы, а как модуляторы белок-белковых взаимодействий. Это не рецензируемое исследование и не обзор первичных
 Полезные материалы
8
мин
02.10.2026
Дополнительные условия на экзаменах: как документируют необходимость и почему СДВГ и тревога спорнее физических ограничений
Вопрос о том, кому положены дополнительные условия на стандартизированных тестах — дополнительное время, тихая аудитория, перерывы, отдельные условия для чтения, математики или письма, — упирается не в список диагнозов, а в процедуру подтверждения. Разбирать это приходится по материалу, который сам
 Дипломы
10
мин
02.10.2026
Что оценивает комиссия на защите диплома: критерии и подготовка доказательств
Комиссия на защите диплома оценивает не «красоту» работы, а то, насколько вы как автор понимаете свой результат и можете его доказать. В разных вузах и даже на разных программах одного вуза набор критериев и порядок оценивания отличаются: общие правила задаёт положение о государственной итоговой атт
 Наука
5
мин
01.10.2026
Формальный анализ CAN XL нашёл семь новых уязвимостей поверх известных проблем классического CAN
Исследователи из Технологического института Джорджии, Университета Пердью и Катарского исследовательского института вычислительной техники провели формальный анализ безопасности MAC-подуровня CAN XL — нового стандарта автомобильных сетей, принятого в мае 2024 года. Работа представлена на 35-м симпоз
 Наука
3
мин
01.10.2026
Акриловое стекло разобрали на мономеры при 180–230 °C без растворителя
Группа Афины Анастасаки из ETH Zurich показала, что коммерческий полиметилметакрилат (ПММА) — акриловое стекло, из которого делают плексиглас и оргстекло, — можно разобрать обратно на мономер при 180–230 °C без растворителя. Результат опубликован в Nature Chemistry 2 сентября 2026 года (DOI: 10.1038
 Образование
4
мин
01.10.2026
В США сотни тысяч детей стоят в очереди на субсидию по уходу, и списки не отражают реальную нужду
Агентство Associated Press вместе с изданием EdSurge 3 сентября 2026 года опубликовало анализ данных о субсидиях на детский уход в США. По подсчётам журналистов, весной 2026 года в 23 штатах и округе Колумбия в листах ожидания находились сотни тысяч детей. Данные о листах ожидания и зачислении собир