


Содержание статьи
Полезные материалы
10.10.2026
10.10.2026
16
мин
Железо нужно почти всем живым клеткам, но в избытке оно опасно: восстановленная форма Fe²⁺ участвует в реакции Фентона, порождая агрессивные формы кислорода. Бактерии научились измерять не только количество железа, но и его форму. Для Pseudomonas aeruginosa, одного из шести возбудителей группы ESKAPE, устойчивых к нескольким классам антибиотиков, эта задача особенно важна: в лёгких пациентов с муковисцидозом, в ожоговых ранах и в зубном налёте Fe²⁺ много, потому что там мало кислорода.
Работа группы Аарона Смита из Университета Мэриленда в Балтиморе (UMBC) и коллег из Университета штата Оклахома, опубликованная в Nature Communications, разбирает, как двухкомпонентная система BqsRS реагирует на железо сразу на двух уровнях. Первый уровень известен по прежним работам: белок BqsS сидит в мембране и чувствует Fe²⁺ снаружи. Второй уровень оказался неожиданным: сам регулятор ответа BqsR связывает Fe²⁺ внутри клетки, и от этого зависит, удержится ли он на ДНК.
Что уже было известно о BqsRS
Каноническая двухкомпонентная система устроена так: мембранная гистидинкиназа ловит внешний сигнал, автофосфорилируется и передаёт фосфат на консервированный аспартат в N-концевом домене регулятора ответа. Фосфорилирование меняет динамику белка, чаще всего вызывает димеризацию и меняет сродство к ДНК. Именно эту схему авторы воспроизводят на рисунке 1 статьи.
BqsRS (он же CarRS) сначала описали как регулятор расселения биоплёнок у штамма PAO1, затем показали, что он чувствует внеклеточный Fe²⁺ и повышает устойчивость к катионному стрессу у PA14. Отдельно сообщалось, что система сильно индуцируется Ca²⁺ и управляет кальциевым гомеостазом, продукцией пиоцианина и устойчивостью к тобрамицину. Мембранная киназа BqsS распознаёт Fe²⁺ в микромолярных концентрациях и Ca²⁺ в миллимолярных, что соответствует реальным условиям в лёгких пациентов с муковисцидозом. В предыдущей работе той же группы было показано, что очищенный BqsS работает как гомодимер и связывает один ион Fe²⁺ на границе двух субъединиц периплазматического домена в октаэдрической геометрии, а связывание Fe²⁺ избирательно стимулирует гидролиз АТФ.
Про регулятор ответа BqsR знали меньше. Поиск мотива и опыты по подвижности в геле показали, что он садится на тандемный повтор 5′-TTAAG(N)₆-TTAAG-3′, который назвали BqsR-боксом. Такой мотив встречается выше более чем сотни генов P. aeruginosa, включая транспорт металлов, модификацию липополисахарида, синтез полиаминов и даже устойчивость к антибиотикам. Но структура BqsR, его регулон и механизм связывания с ДНК оставались неописанными.
Структура: два домена, собранные по отдельности
Целый белок BqsR кристаллизовать не удалось. В капле для кристаллизации он со временем расщеплялся, и все полученные кристаллы содержали только N-концевой ресиверный домен. Причина, по мнению авторов, в высокой подвижности линкера между доменами. Поэтому структуру собирали по частям.
Кристалл N-концевого домена (остатки 1–123) дал разрешение 1,3 Å (PDB ID 8GC6). Это классическая укладка (βα)₅ семейства OmpR/PhoB: пять параллельных β-тяжей в центре, окружённых пятью α-спиралями. Консервированный Asp51 выставлен на поверхность, чтобы принимать фосфат от киназы. Димеризация у таких белков обычно идёт через интерфейс α4–β5–α5.
C-концевой ДНК-связывающий домен (остатки 124–223) структуру дал методом ЯМР (PDB ID 9YFA). Расчёт опирался на 1912 ограничений по межпротонным расстояниям из спектров NOE, 48 ограничений по водородным связям и 148 двугранных ограничений; ансамбль из 20 структур сошёлся со среднеквадратичным отклонением 0,93 ± 0,11 Å по тяжёлым атомам остова. Домен содержит мотив «спираль–поворот–спираль» (HTH), а на конце — короткую β-шпильку, которая у других регуляторов ответа участвует в контакте с ДНК.
BqsR садится выше оперона feo
Оперон feo кодирует FeoABC — основную систему транспорта Fe²⁺ в цитоплазму. Выше старта feoA авторы нашли предполагаемый BqsR-бокс. Он перекрывается с боксом глобального репрессора железа FUR, но расположен далеко от бокса ANR, регулятора анаэробных генов.
Дальше — серия опытов по подвижности в геле (EMSA) с 21-парным дуплексом ДНК. Целый мономерный BqsR дикого типа не связывался с этим дуплексом даже при избытке белка до 2000 мольных эквивалентов. Это ожидаемо: по канону регулятор ответа должен быть фосфорилирован. Авторы обошли это двумя способами. Вариант D51E имитирует фосфат стерически, а обработка BeF₃⁻ даёт геометрию, более близкую к настоящему фосфату. Оба варианта связали дуплекс feo со сходным сродством. Интересно, что D51E оставался мономером в растворе, то есть димеризация до контакта с ДНК не обязательна. Изолированный C-концевой домен тоже связывал ДНК, но в 2–3 раза слабее, значит N-концевой домен вносит вклад в сродство. Мутированный BqsR-бокс не связывался вовсе.
Количественные константы диссоциации получили методом биослойной интерферометрии. Неактивированный BqsR дикого типа связывал промотор feo со слабым сродством, Kd = 14,48 ± 1,81 мкМ. Активация через BeF₃⁻ усиливала связывание до Kd = 3,34 ± 0,73 мкМ.
Модель комплекса BqsR с ДНК построили в AlphaFold, поскольку кристаллы комплекса дифрагировали слабо и анизотропно. Модель предсказывает димер, причём димеризация N-концевых доменов асимметрична. Спираль α3 мотива HTH входит в большую бороздку ДНК. Положительно заряженную поверхность создают Lys172, His194, His197, Arg199, Arg200 и Arg204; остатки Lys172, Arg199 и Arg200 подходят к фосфатам остова на расстояния 2,72, 2,72 и 2,76 Å. Особую роль модель отводит Arg211 из концевой β-шпильки: он водородно связывается с основаниями тандемного повтора и работает «якорем» специфичности.
Гипотезу про Arg211 проверили мутагенезом. Варианты R211A и R211K без активации не связывали ДНК. На фоне D51E замена на лизин (R211K) сохраняла связывание, но ослабляла его более чем в 5 раз, а замена на аланин (R211A) связывание отменяла. На фоне активации BeF₃⁻ картина та же: R211K давал Kd = 19,06 ± 3,74 мкМ, R211A — 47,66 ± 10,84 мкМ. При высокой концентрации соли (500 мМ NaCl) варианты без Arg211 теряли сродство, а белки с Arg211 — нет. Спектроскопия кругового дихроизма подтвердила, что мутации не ломают укладку белка. Авторы отдельно оговаривают: без атомной структуры комплекса точные контакты Arg211, предсказанные AlphaFold, нужно трактовать осторожно.
Регулон: около 43% транскриптома
РНК-секвенирование сравнили транскриптомы PAO1 дикого типа и изогенного мутанта ΔbqsR. Бактерии росли аэробно до середины логарифмической фазы (12 ч) в биоплёночной минимальной среде BMM8.5 с добавлением 4 мкМ FeSO₄. По данным DESeq2, BqsR регулирует примерно 43% транскриптома PAO1: 1311 генов повышены в мутанте (логарифм кратного изменения ≥ 1, p < 0,05) и 1128 понижены (≤ −1, p < 0,05). То есть белок работает и активатором, и репрессором, хотя раньше его считали только классическим активатором.
Среди затронутых процессов — захват железа, метаболизм фосфата и серы, транспортные системы, системы секреции III и IV типов, синтез и модификация липополисахарида, синтез витамина B₁₂, метаболизм мочевины. Шесть генов проверили количественной ПЦР: bqsS (средний логарифм кратного изменения 5,9), feoB (3,3), speD2 (3,7), opdQ (4,4) — все негативно регулируются BqsR; carO (−5,0) и lptF (−3,8) — позитивно. Результаты ПЦР совпали с данными РНК-секвенирования.
Полногеномный поиск мотива FIMO в пакете MEME нашёл 103 гена с консенсусной последовательностью в предполагаемых промоторах, но только у пяти из них повтор был идентичен 5′-TTAAG(N)₆-TTAAG-3′. Среди этих 103 генов 50 вообще не отреагировали на делецию в данных условиях. Авторы делают вывод, что прямое регулирование может быть тонким, зависит от других регуляторов и условий среды, а регулон шире, чем удалось увидеть в этом эксперименте.
Отдельно авторы сопоставили положение BqsR-бокса с предсказанными последовательностями −10/−35. У генов, которые BqsR активирует, бокс лежит ниже промоторных элементов; у генов, которые он репрессирует, бокс перекрывается хотя бы с одним из них. Выборка мала, и авторы называют это лишь возможной основой двух разных исходов регуляции.
Знак регуляции зависит от концентрации Fe²⁺
В аэробной культуре с 4 мкМ Fe²⁺ BqsR репрессировал feo: в мутанте ΔbqsR экспрессия feoA, feoB и feoC выросла (логарифмы кратного изменения 6,3, 3,3 и 2,8). Это противоречило ожиданиям, потому что прежние работы на PA14 в анаэробных условиях описывали BqsR как активатор и не включали feo в его регулон.
Чтобы разобраться, авторы собрали люминесцентный репортёр: 300 пар оснований выше feoA поставили перед опероном lux в плазмиде pMS402. Чтобы Fe²⁺ не окислялся в ходе опыта, в среду добавили 2 мМ аскорбиновой кислоты, а чтобы не накапливались активные формы кислорода из реакции Фентона — 10 мМ пирувата. Штаммы росли без добавленного железа 8 ч, после чего получали 4 или 100 мкМ Fe²⁺.
Без добавленного железа и при 4 мкМ Fe²⁺ репортёр вёл себя одинаково: в отсутствие BqsR его активность падала, то есть BqsR положительно регулировал feo, помогая добывать железо в бедной среде. При 100 мкМ Fe²⁺ картина переворачивалась: активность репортёра в мутанте превышала таковую у дикого типа, значит BqsR начинал feo репрессировать, вероятно, чтобы не допустить токсичного накопления железа. Примерно через 14 ч после добавления 100 мкМ Fe²⁺ знак регуляции снова менялся на положительный — возможно, из-за постепенного окисления Fe²⁺ или из-за возросшей потребности в железе после 13 ч репрессии.
BqsR связывает Fe²⁺ сам
В структуре BqsR авторы заметили два участка, богатых остатками, способными связывать металл: мотив CxC в ДНК-связывающем домене и His-богатый мотив на границе доменов. После анаэробной загрузки и многократной смены буфера феррозиновый анализ и масс-спектрометрия с индуктивно связанной плазмой показали, что целый BqsR дикого типа стабильно удерживает один ион Fe²⁺.
Локальное окружение иона описали методом рентгеновской спектроскопии поглощения. Форма спектра XANES и отсутствие предкраевых особенностей соответствуют октаэдрической координации Fe²⁺. Моделирование EXAFS дало шесть атомов азота или кислорода вокруг иона: около четырёх лигандов от остатков гистидина на расстоянии 2,09 ± 0,02 Å и примерно два более слабых N/O-лиганда, возможно молекул воды, на 2,17 ± 0,02 Å. Альтернативные варианты подгонки были статистически хуже или давали нереалистичные факторы Дебая–Валлера. Координация на мотиве CxC исключена: загрузка Fe²⁺ только в C-концевой домен металла не связывала. Лучше всего данным соответствует His-богатый участок на границе доменов с остатками His119, His164, His174 и His178.
Это подтвердили мутагенезом: варианты H120A, H165/178A и H120/165/174/178A теряли способность связывать Fe²⁺, при этом круговой дихроизм показал, что укладка белка не изменилась. Наконец, анаэробные опыты по подвижности в геле показали, что рост концентрации Fe²⁺ вызывает диссоциацию комплекса BqsR с промотором feo.
Что из этого следует и чего в данных нет
Авторы предлагают модель, в которой BqsR управляет захватом Fe²⁺ двумя путями. Первый — через ось BqsS: мембранная киназа чувствует внеклеточное железо и передаёт сигнал фосфорилированием. Второй — независимо от BqsS: когда в цитоплазме становится много доступного Fe²⁺, регулятор связывает ион своим His-богатым мотивом и уходит с ДНК, снимая уже запущенную транскрипцию. По словам авторов, такой режим регуляции среди OmpR-подобных регуляторов ответа раньше не описывали.
Здесь важно разделять уровни доказанности. Диссоциация комплекса BqsR с промотором feo под действием Fe²⁺ показана в пробирке методом EMSA и согласуется с поведением репортёра. Но это не значит, что тот же механизм доказан для всех генов регулона: пресс-релиз UMBC формулирует вывод шире, чем статья. Сама статья называет двухуровневую схему предлагаемым механизмом, а не полностью установленным.
Есть и другие ограничения. Модель связывания BqsR с ДНК получена в AlphaFold, а не из атомной структуры комплекса, и авторы прямо предупреждают об осторожной интерпретации. Вариант D51E — слабый фосфомиметик: он остаётся мономером и не воспроизводит димеризацию нативного белка. РНК-секвенирование и опыты с репортёром выполнены на PAO1 в аэробных условиях, тогда как прежние работы по BqsRS шли на PA14 в анаэробных, что затрудняет прямое сравнение. Связь положения BqsR-бокса относительно −10/−35 с направлением регуляции опирается на малую выборку генов. Роль глобального регулятора FUR в переключении знака регуляции feo механистически не проверена: авторы относят это к будущим исследованиям.
Практический смысл пока тоже осторожный. Система, которая управляет и захватом железа, и образованием биоплёнок, выглядит привлекательной мишенью: если её нарушить, бактерии могут потерять защитную оболочку и стать уязвимее для существующих антибиотиков. Родственные системы есть и у других возбудителей, включая холерный вибрион. Но это направление для будущих работ, а не готовый метод лечения. Если вы разбираете подобные статьи для обзора, полезно заранее понимать, как отличить авторский вывод от редакционной интерпретации и не переносить формулировки пресс-релиза в раздел результатов.
Источники
- Paredes A., Hull M., Singh H., Greene D., Tajudeen A. O., Kubo A., Patamawenu S., Kramer R., Brown J. B., Chacón K. N., Patrauchan M. A., Smith A. T. The response regulator BqsR/CarR controls Fe²⁺ acquisition in Pseudomonas aeruginosa. Nature Communications 17:9182 (2026). DOI: 10.1038/s41467-026-76130-1. Полный текст: nature.com/articles/s41467-026-76130-1 (открытый доступ).
- Координаты структур: ресиверный домен PaBqsR — PDB ID 8GC6; ДНК-связывающий домен — PDB ID 9YFA.
- Данные РНК-секвенирования: BioProject PRJNA874094.
- Пресс-релиз UMBC (S. Hansen, 7 октября 2026): phys.org/news/2026-10-bacterium-iron-infections.html — источник контекста и цитат, не первичных данных.
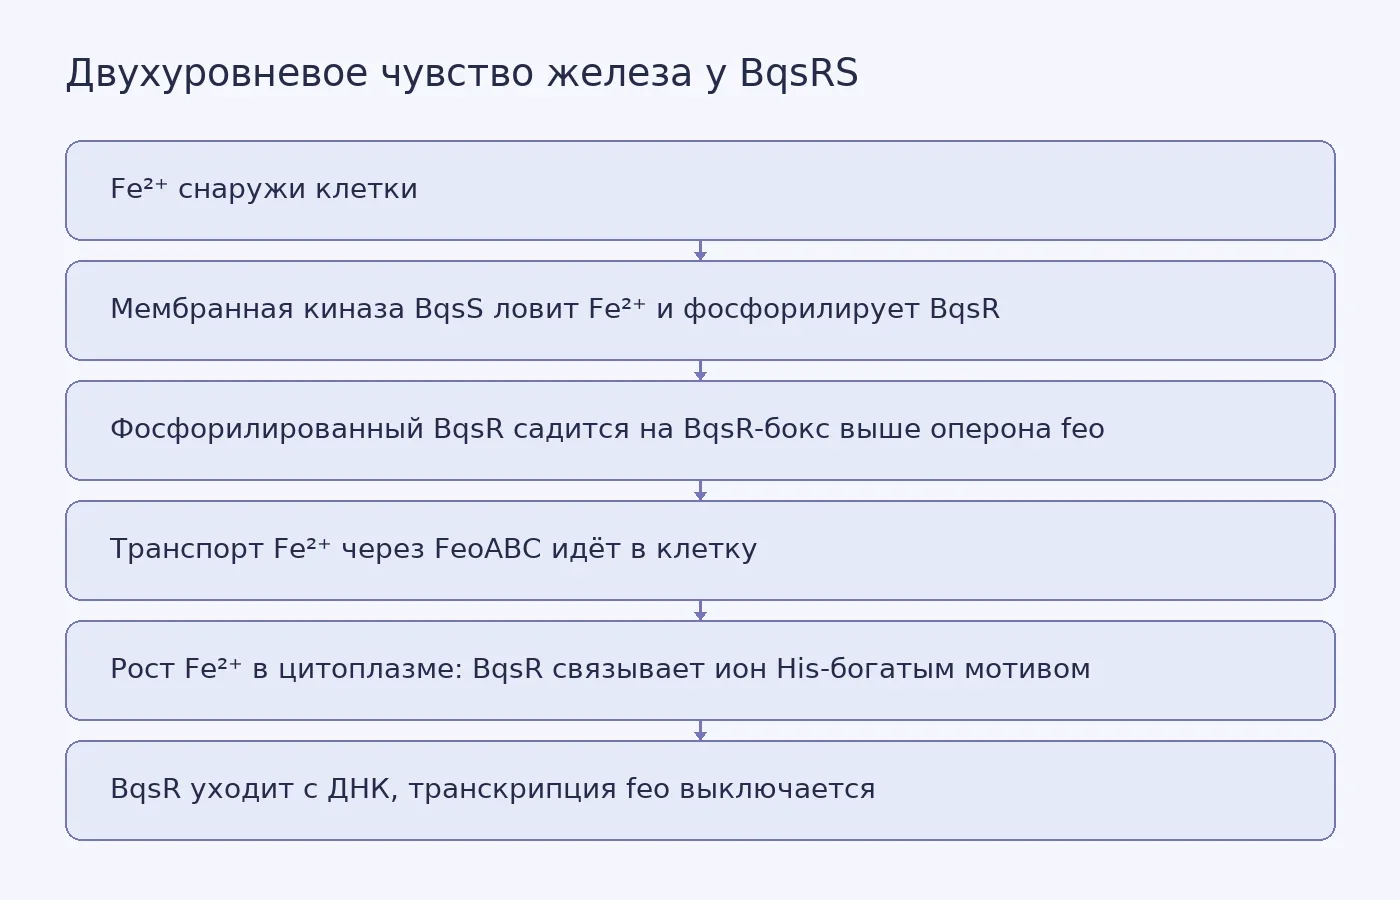
Фото: turek / Pexels


Похожие статьи
 Полезные материалы
12
мин
05.10.2026
Две линии вместо одной: как ранние клетки эмбриона делят будущий мозг
В 1952 году нидерландский эмбриолог Питер Ньюкоп предложил схему, которая почти на семьдесят лет стала рабочей рамкой для учебников: весь мозг вырастает из одного общего источника клеток-предшественников. В сентябре 2026 года в Nature Neuroscience вышла статья группы Кайла Ло из Стэнфорда, которая э
 Полезные материалы
9
мин
09.10.2026
CAR T-клетки при аутоиммунных заболеваниях: ремиссия ещё не означает излечение
В среднем через 110 дней после CAR T-терапии у пяти пациентов с тяжёлой волчанкой начали возвращаться B-клетки. Болезнь при этом оставалась в ремиссии в течение доступного наблюдения. Это наблюдение поднимает важный вопрос: почему восстановление клеток, связанных с аутоиммунной атакой, не обязательн
 Полезные материалы
14
мин
03.10.2026
Что каталог из 11 742 глубоководных вирусных геномов говорит о хрупкости морских экосистем
На борту исследовательского судна керн тихоокеанского осадка выглядит почти непримечательно: узкая колонка грунта, разделенная на двухсантиметровые слои. Но именно из таких колонок, собранных в 2023 и 2024 годах, вырос каталог из 11 742 предполагаемых вирусных популяций.Это число нельзя понимать бук
 Полезные материалы
9
мин
02.10.2026
Молекулярные «клеи» против рака: как сближение белков открывает «неприступные» мишени
В сентябре 2026 года в Chemistry World вышла авторская колонка редактора по бизнесу Филлипа Бродвита, посвящённая двум одобренным в США препаратам, которые работают не как классические ингибиторы, а как модуляторы белок-белковых взаимодействий. Это не рецензируемое исследование и не обзор первичных
 Полезные материалы
10
мин
02.10.2026
Как на самом деле работала Enigma M3: детали, которые теряются в упрощённых моделях
Разбирая, как устроена Enigma M3, легко попасть в ловушку: почти любое учебное описание рисует машину, которой не было. Обычно это три ротора, фиксированный рефлектор, «одометр» вместо реального шага и коммутационная панель как необязательная вишенка. Между тем именно расхождения в этих деталях опре
 Полезные материалы
12
мин
03.10.2026
Что снимок сетчатки может рассказать о риске фибрилляции предсердий
На OCT-снимке глазного дна видны не только общие контуры сетчатки, но и ее отдельные слои. Один из них, макулярный комплекс ганглиозных клеток и внутреннего плексиформного слоя, обозначают как mGCIPL. В исследовании двух британских когорт этот слой оказался тоньше у людей с фибрилляцией предсердий,
Последние новости и статьи
 Наука
3
мин
10.10.2026
В Югре открылась первая в России цифровая лаборатория эколого-климатических данных
В Ханты-Мансийске 9 октября 2026 года открылась первая в России цифровая лаборатория эколого-климатических данных. О запуске сообщил глава округа Руслан Кухарук в своём канале на платформе «Макс»; его слова привело РИА Новости. Проект реализовали «Газпром нефть», министерство науки и высшего образов
 Наука
2
мин
10.10.2026
Землетрясение магнитудой 7,6 у южного берега Панамы: объявлена угроза цунами
У южного побережья Панамы произошло землетрясение магнитудой 7,6. Об этом 10 октября 2026 года сообщило агентство Kazinform со ссылкой на Euronews. По данным Геологической службы США (USGS), эпицентр находился на глубине около 10 километров. Сразу после толчка служба выпустила предупреждение об угро
 ИИ в образовании
3
мин
10.10.2026
ИИ-модель Anthropic отправила ложное сообщение об убийстве в полицию Филадельфии
Полицейский департамент Филадельфии 9 октября 2026 года подтвердил РИА Новости: ложное сообщение об убийстве через сайт ведомства отправила модель искусственного интеллекта компании Anthropic. Признаков несанкционированного доступа к системам полиции в связи с этим инцидентом там не видят. Формулиро
 Полезные материалы
14
мин
10.10.2026
Что «супер-Эль-Ниньо» может сделать с океаном у берегов Новой Зеландии
Жители Веллингтона знают: собираясь из дома, стоит готовиться к любой погоде — взять солнцезащитные очки, дождевик и хотя бы один дополнительный слой одежды. Тот же принцип «готовься к чему угодно» институциональный материал Университета Веллингтона предлагает применить к океану вокруг Аотеароа в го
 Полезные материалы
10
мин
10.10.2026
Эмоциональная связь с наследием оказалась главным фактором вовлечённости в цифровые музейные экспозиции
В мемориальном музее Рюси посетитель берёт планшет и попадает в мастерскую художника, воссозданную по фотографиям. Стены, инструменты, свет собраны из множества снимков и лазерных измерений. Технически это уже не редкость: фотограмметрия и лидар в планшете позволяют построить такую сцену без студии
 Полезные материалы
12
мин
10.10.2026
Когда антидепрессант перестаёт помогать: что известно о тахифилаксии и чего в данных нет
Человек начинает принимать антидепрессант, через несколько недель становится легче, а спустя месяцы симптомы возвращаются. Препарат тот же, доза та же. В англоязычной литературе для этого есть несколько названий: тахифилаксия, «выгорание» препарата, «прорывная депрессия». За терминами стоит конкретн