


Содержание статьи
Вопросы студентов
08.11.2026
08.11.2026
11
мин
У покоящейся клетки почти готов маршрут к делению, но вход на него закрыт. Обычно внешний сигнал, например фактор роста, запускает каскад: меняется активность генов, отдельные участки хроматина становятся доступнее, а затем факторы транскрипции связываются с ДНК и включают программу клеточного цикла.
Исследование в The EMBO Journal описывает другой сценарий. В использованных клеточных моделях белок E2F1 способен быстро вывести клетку из покоя, хотя широкого открытия хроматина при этом не происходит. Он связывается с участками, которые уже немного доступны, а в некоторых экспериментах in vitro распознаёт последовательность ДНК прямо внутри нуклеосомы.
Это не означает, что E2F1 универсально переключает деление или что такой механизм уже доказан в опухолях. Работа выполнена на клеточных линиях и показывает конкретную молекулярную возможность. Но она меняет привычный порядок событий: для запуска клеточного цикла не всегда нужно сначала открыть большие области хроматина.
Что проверяли авторы
Группа Герральда Лодейка, Сета Рубина и С. Али Шариати главным образом работала с фибробластами мыши NIH/3T3. Клетки переводили в состояние покоя, культивируя их 48 часов в среде с 0,25% сыворотки. Затем исследователи либо индуцировали экспрессию E2F1 доксициклином, либо возвращали клетки в среду с 10% сыворотки. Пустой вектор использовали как контроль.
Вход в S-фазу оценивали по включению BrdU, а продвижение к митозу отслеживали по фосфорилированному гистону H3. За отдельными клетками наблюдали с помощью живой флуоресцентной микроскопии, используя репортеры E2F1-Clover и FUCCI-CDT1-mCherry. Изменения экспрессии во времени измеряли методом RNA-seq через 0, 2, 6 и 12 часов после индукции. Доступность хроматина проверяли с помощью ATAC-seq, а участки связывания E2F1 картировали методом ChIP-seq.
Последний вопрос был биохимическим: может ли E2F1 связываться с нуклеосомой, где ДНК намотана на белки-гистоны? Для ответа авторы воссоздали нуклеосомы вне клетки и применили флуоресцентную поляризацию вместе с методом SeEN-seq. Такая комбинация связывает наблюдения в клетке с проверкой возможного физического механизма.
Порог, после которого клетка начинает цикл
В течение 24 часов после индукции E2F1 примерно 80% клеток NIH/3T3 вошли в S-фазу. Около 12% были положительны по маркеру G2/M, то есть достигли поздних стадий цикла. Авторы формулируют основной результат так: «Одной экспрессии E2F1 достаточно, чтобы вывести клетки из покоя и ввести их в митоз».
E2F1 действовал не как плавный регулятор громкости. При увеличении дозы доксициклина клетки начинали повторный вход в цикл только после достижения определённого уровня экспрессии. В этой системе порог соответствовал 50 нг/мл доксициклина. При более низкой концентрации белок занимал сравнительно небольшое число участков генома, а после перехода к 50 нг/мл число пиков связывания резко возрастало.
Живая микроскопия показала, что клетки с E2F1 начинали переход раньше клеток, которым вернули сыворотку. Это сравнение важно: E2F1 не просто имитировал внешний сигнал, а запускал более короткую программу. За 60 часов большинство клеток в обеих активированных группах совершали от одного до трёх делений. При длительной экспрессии E2F1 многие клетки затем погибали, поэтому результат нельзя трактовать как нормальное устойчивое размножение.
Хроматин не обязан открываться целиком
Хроматин можно представить как длинную ДНК, намотанную на гистоны и упакованную в нуклеосомы. Если участок слишком плотно свернут, фактор транскрипции может не добраться до нужной последовательности. Отсюда возникает простая модель: сначала хроматин открывается, затем фактор связывается с ДНК, после чего начинается транскрипция.
Стимуляция сывороткой действительно сопровождалась широкими изменениями доступности. Через 12 часов ATAC-seq выявил примерно 31 000 доступных участков, тогда как в контроле и при индукции E2F1 их было около 8 000. При этом E2F1 не вызвал общего увеличения доступности промоторов генов, которые начали активироваться.
Авторы обнаружили другую картину. В покоящихся клетках уже сохранялся слабый сигнал ATAC-seq возле части генов клеточного цикла. E2F1 мог использовать эти участки без масштабной перестройки соседнего хроматина. В статье это сформулировано так: «Низкого уровня доступности хроматина, сохраняющегося в состоянии покоя, достаточно для связывания E2F1 и транскрипции генов».
Возле гена Bub1, участвующего в контроле митоза, исследователи нашли отчётливый пик связывания E2F1, но не обнаружили заметного пика ATAC-seq. Это не доказывает, что участок абсолютно закрыт: ATAC-seq измеряет доступность в масштабе клеточной популяции и зависит от чувствительности метода. Однако результат показывает, что E2F1 может заметно связываться даже там, где стандартный сигнал доступности очень слаб или отсутствует.
Что происходит на уровне нуклеосомы
Клеточные данные оставляли два объяснения. E2F1 мог связываться с небольшими свободными участками, которые ATAC-seq регистрирует неуверенно. Другой вариант состоял в том, что белок напрямую взаимодействовал с ДНК, остающейся на нуклеосоме. Биохимический эксперимент поддержал второй вариант.
ДНК-связывающие домены E2F1 и его партнёра DP2 слабо связывались со свободной ДНК: константа диссоциации составляла Kd = 1,5 ± 0,1 мкМ. С меченной нуклеосомой комплекс был устойчивее: Kd = 0,12 ± 0,01 мкМ. В контрольном опыте трансактивационный домен E2F1 сигнала связывания не дал.
Метод SeEN-seq показал, что E2F1-DP2 предпочитает определённые положения мотива E2F на нуклеосомной ДНК, особенно ближе к краям намотанного участка. Поэтому наиболее осторожная модель выглядит так: E2F1 достигает сайтов в уже немного доступном хроматине, а часть последовательностей распознаёт в нуклеосомном контексте. После связывания он включает ранние гены клеточного цикла, среди которых авторы выделяют Ccne1, Ccne2, Pcna и Aurkb.
Здесь остаётся пробел. Исследование показывает связывание E2F1 с нуклеосомами и активацию генов, но не устанавливает полный причинный каскад между этими событиями. Возможно, для запуска транскрипции достаточно локального изменения положения или конфигурации нуклеосомы, даже если общий сигнал ATAC-seq почти не меняется. Авторы прямо называют этот механизм гипотезой для дальнейшей проверки.
Почему это не универсальное правило для клеток
Исследователи проверили систему ещё на трёх клеточных линиях. MCF10A, происходящие из эпителия молочной железы, ответили на индукцию E2F1 и снова вошли в клеточный цикл. В клетках BJ1 и RPE1 заметного увеличения включения BrdU не было.
Эта часть эксперимента ограничивает обобщение результата. В двух клеточных типах E2F1 не сработал в той же постановке. Причиной могли быть различия в партнёрах E2F1, состоянии регуляторных участков или других элементах клеточной сети, но работа не устанавливает, какой именно фактор оказался решающим.
Даже в MCF10A результат не сводился к полному отсутствию перестройки хроматина. После индукции E2F1 появились новые доступные области, хотя их было гораздо меньше, чем после добавления полной среды. Поэтому точнее говорить не «E2F1 вообще не меняет хроматин», а «E2F1 запускает программу клеточного цикла без широкого открытия хроматина».
Что это говорит о раке
E2F1 давно связывают с регуляцией клеточного цикла, а нарушения этой системы встречаются при раке. Новая работа предлагает возможное объяснение того, как избыток E2F1 может помочь клетке обойти часть обычных условий входа в цикл: белку не обязательно ждать полной перестройки хроматина, если нужные регуляторные участки уже немного доступны или могут быть распознаны на нуклеосомах.
Но это пока не доказательство того, что опухоли используют именно такой путь. В работе нет экспериментов на опухолях животных или пациентах. Не проверено и то, остановит ли блокирование связывания E2F1 с нуклеосомами рост конкретного типа рака. Практический смысл результата пока ограничен задачей для будущих исследований: искать опухоли, особенно зависимые от E2F1, и проверять, можно ли вмешаться непосредственно в связывание белка с ДНК или в последующую активацию генов.
Для понимания таких выводов полезно отделять результат эксперимента от возможного применения, как это делают при критическом анализе научной статьи. Здесь результатом являются вход клеток в цикл, отсутствие широкого сигнала ATAC-seq и связывание E2F1-DP2 с нуклеосомами. Связь с опухолевой прогрессией остаётся проверяемой гипотезой.
Насколько убедителен вывод
Сильная сторона работы в том, что авторы не опирались на один маркер или один метод. Они наблюдали поведение отдельных клеток, измеряли вход в S-фазу и митоз, сравнивали временные профили RNA-seq и ATAC-seq, картировали связывание E2F1 и отдельно проверяли его взаимодействие с нуклеосомами. Удаление ДНК-связывающего домена E2F1 полностью лишало белок способности запускать повторный вход в цикл по данным BrdU, фосфо-гистона H3 и репортера FUCCI-CDT1-mCherry. Это усиливает причинную интерпретацию роли связывания с ДНК.
Ограничения не менее важны. Основные эксперименты провели на искусственно индуцируемой системе и клеточных линиях. Покой моделировали голоданием по сыворотке, а такое состояние не полностью совпадает с физиологическим покоем ткани. ATAC-seq не показывает всех локальных изменений положения нуклеосом. Кроме того, в дополнительных линиях число независимых экспериментов было небольшим: для MCF10A и RPE1 по два, для BJ1 три.
Ответ на исходный вопрос в этих моделях выглядит так: клетка может перейти из покоя к делению, если E2F1 достигает порогового уровня, связывается с доступными или нуклеосомными участками ДНК и быстро включает гены клеточного цикла. Для этого не требуется глобально распаковывать хроматин. Но как именно локальное связывание превращается в устойчивую транскрипцию и повторяется ли этот механизм в нормальной ткани и опухолях, ещё предстоит установить.
Источники
- Lodewijk G. A. et al. E2F1 induces a G0-G1 reentry transcriptional program without changing chromatin accessibility. The EMBO Journal, 2026. DOI: 10.1038/s44318-026-00936-4. Полный текст: Springer Nature; PDF.
- Mestri S. Cancer-linked gene uses 'shortcut' to trigger cell division. Phys.org, 6 ноября 2026 года. Материал о работе.
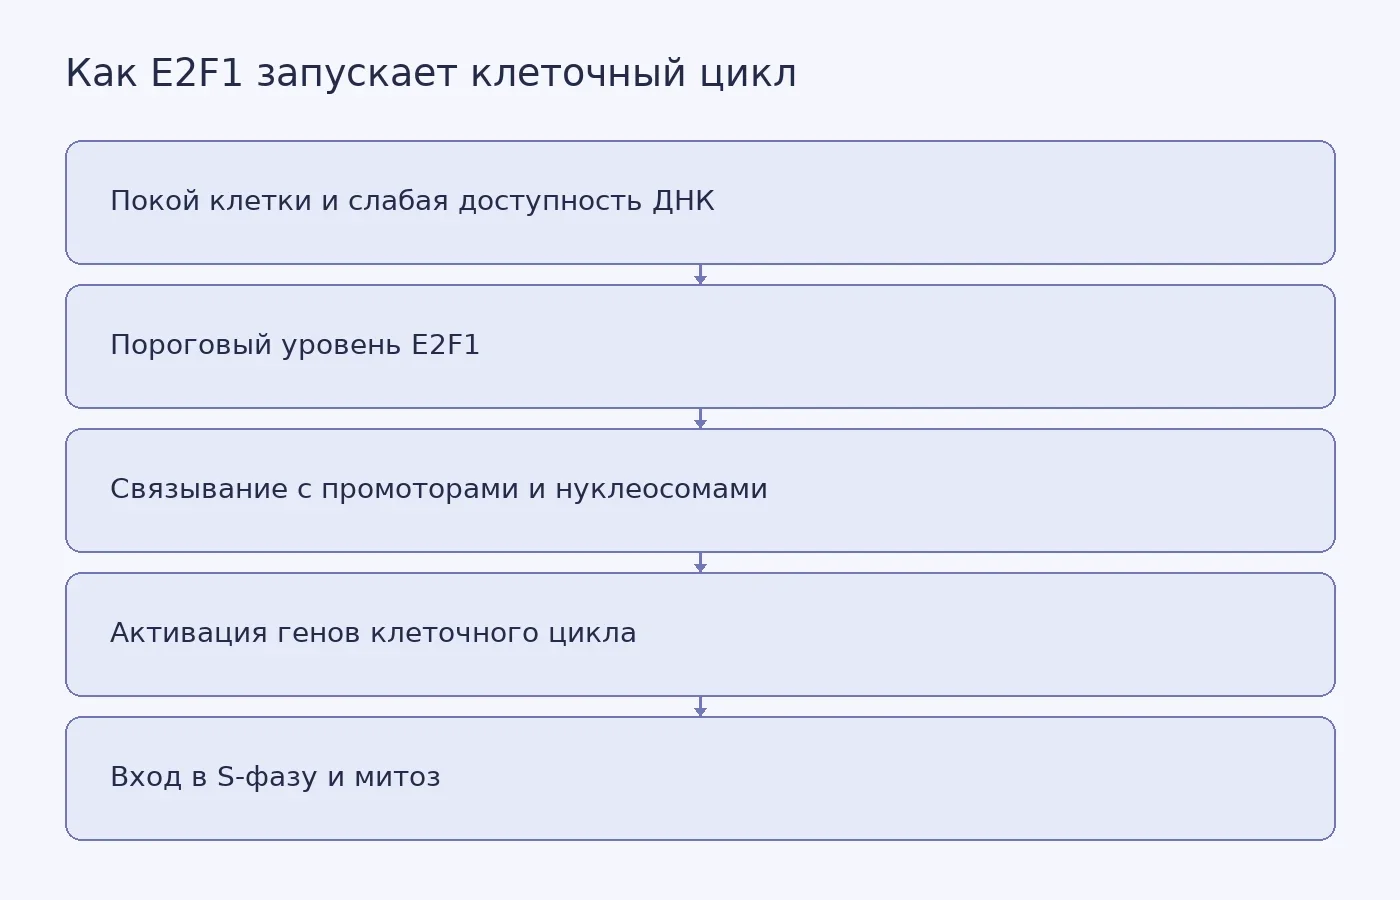
Фото: Monstera Production / Pexels


Похожие статьи
 Вопросы студентов
12
мин
25.10.2026
Операционализация понятий: от темы исследования к показателям
Представим студента, который открывает страницу курса и нажимает на запись лекции. Видео не запускается. В другом случае оно открывается, но нужную тему приходится долго искать. Бывает и так, что запись доступна, однако смотреть её можно только в неудобное время. Во всех трёх ситуациях легко сказать
 Вопросы студентов
10
мин
25.10.2026
Шкалы измерения: номинальная, порядковая, интервальная и отношений
В таблице стоят числа 1, 2, 3, 4 и 5. Но что они означают: количество, порядок или всего лишь коды ответов? Чтобы понять, какие выводы можно сделать из данных, сначала нужно определить смысл значений переменной.Рассмотрим четыре уровня измерения на условном примере учебного проекта о просмотре запис
.jpg) Вопросы студентов
12
мин
17.10.2023
877
Как узнать отчислен ли студент из вуза? Как восстановиться?
Отчисление студента без его желания из вуза - процедура не из приятных. Такое наказание применяется за систематические прогулы, плохую успеваемость, другие нарушения устава вуза и его внутренних распорядков. Чтобы заранее ознакомиться с перечнем причин, которые могут навлечь на студента отчисление,
 Вопросы студентов
14
мин
29.10.2026
Подготовка к A2 Key: короткое письмо и план самопроверки
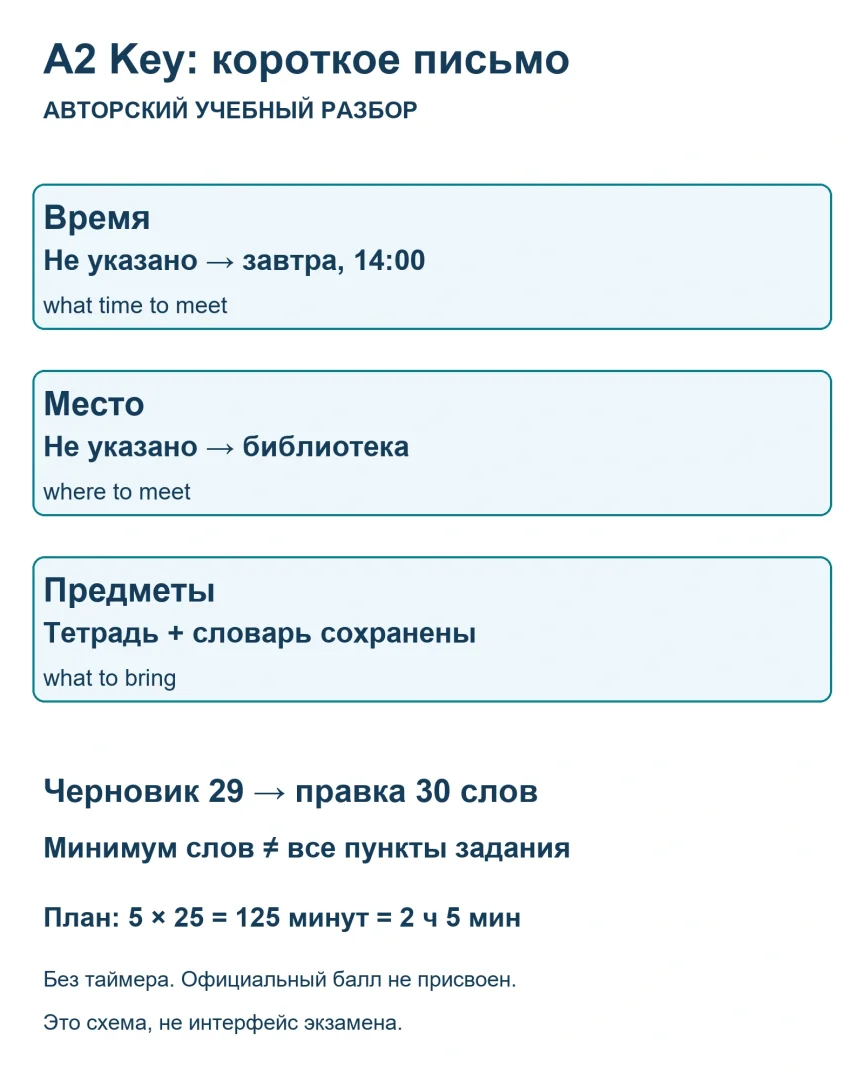
Подготовка к A2 Key, который также ищут как KET, начинается с небольшого проверяемого действия: прочитать условие, ответить на каждый пункт и найти эти ответы в своём тексте. В коротком письме можно набрать нужное количество слов и всё равно не сообщить адресату время или место встречи. Далее идут к
 Вопросы студентов
20
мин
12.01.2023
18779
Как стать кандидатом наук?
Ученая степень «кандидат наук» позволяет соискателю в будущем претендовать на звание «доцент». Для ее получения аспирант несколько лет пишет диссертацию по выбранной тематике с подробным описанием проведенных исследований. Успешная защита научного труда поможет дальнейшему пр
 Вопросы студентов
9
мин
03.10.2026
Изменения ЕГЭ-2027: что уже опубликовано ФИПИ и чем это отличается от 2026 года
К началу октября 2026 года на сайте ФИПИ лежат два набора документов, и их легко перепутать. Один описывает экзамен, который уже прошёл общественное обсуждение и утверждён, — это КИМ ЕГЭ 2026 года. Второй только предложен к обсуждению: это проекты документов, определяющих структуру и содержание КИМ
Последние новости и статьи
 Наука
2
мин
08.11.2026
Иридиевый катализатор активировал химиопрепарат рядом с опухолевыми клетками
Команда химика Томаса Уорда из Университета Базеля 3 ноября описала подход, который позволяет высвобождать противораковый препарат рядом с опухолевыми клетками. Иридиевый катализатор соединили с ингибитором белка hCA IX. Он работает как молекулярный адрес: помогает катализатору связываться с клеткам
 Наука
3
мин
08.11.2026
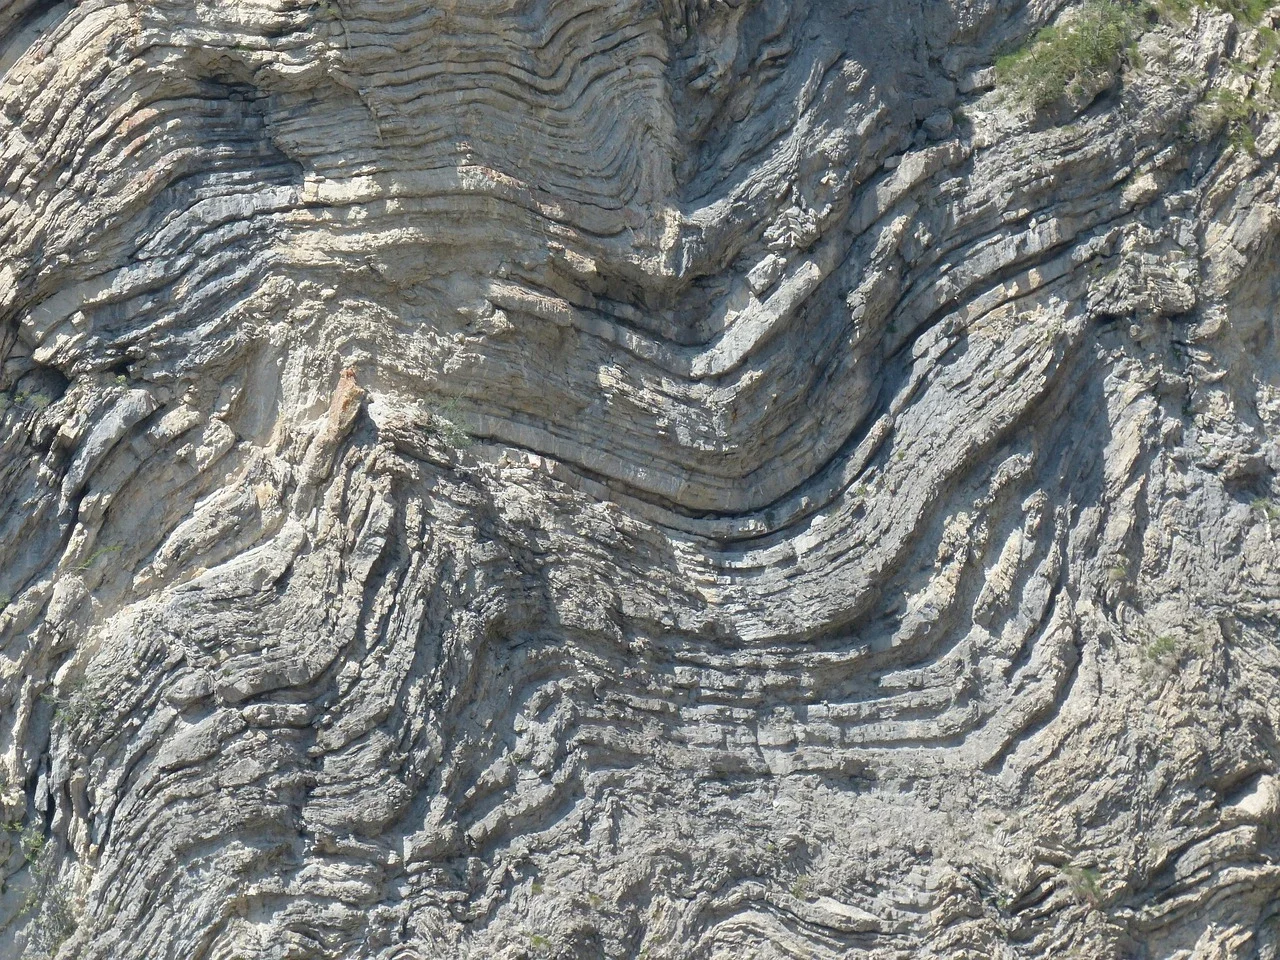
Модели связали Великий разрыв с подъёмом и погружением древних континентов
Сантос Дхунгана и Николас Фламан из Университета Вуллонгонга предложили объяснение Великого разрыва, одной из крупнейших лакун в геологической летописи Земли. Их исследование опубликовано 4 ноября 2026 года в журнале Nature.В некоторых районах осадочные породы кембрийского периода, возрастом около 5
 Студенческая жизнь
3
мин
08.11.2026
Во Франции 7 ноября на протестах задержали не менее 360 человек
Во Франции 7 ноября на протестах задержали не менее 360 человек, сообщило Министерство внутренних дел страны. По данным ведомства, в акциях участвовали 146 тыс. человек, включая 46 тыс. в Париже. Молодёжное межпрофсоюзное объединение оценило число участников демонстраций в 250 тыс., из них 75 тыс. в
 Диссертации по темам
23
мин
08.11.2026
Монографии по теории государства и права: маршрут чтения
Монографии по теории государства и права полезнее выбирать под исследовательский вопрос: что считать государством, как различать его типы, как соотносятся правовое устройство, социальная практика и цели публичной власти. Ниже — карта чтения по этим направлениям, сравнение конкретных прочитанных фраг
 Вопросы студентов
34
мин
08.11.2026
Монографии о праве собственности: как выбрать литературу для теории и защиты недвижимости
Монографии о праве собственности нужны для разных задач: объяснить содержание права, отделить его от владения, исследовать оборот вещей или сравнить способы защиты недвижимости. Перед подготовкой собственной научной рукописи полезно определить этот выбор: цена на монографию обсуждается применительно
 Помощь по написанию
32
мин
08.11.2026
Монография Евгении Червец о личных фондах: как читать аргумент об обособлении имущества
Монография Евгении Червец «Личные фонды на стыке права и экономики: механизмы управления частным капиталом» помогает поставить исследовательский вопрос: какую задачу решает обособление имущества и как соотносятся интересы собственника, управляющего и кредиторов. Если вы собираете материал для своей