


Содержание статьи
Полезные материалы
21.10.2026
21.10.2026
9
мин
Представим простую цепочку: сигнал входит в первый узел, меняется, проходит через следующий и выходит в виде команды. Если эта схема верно описывает работу цепи, активность каждого звена можно связать с его задачей. Но во многих системах мозга сигнал не движется только вперёд. Выход возвращается в контур, смешивается с новой сенсорной информацией и меняется вместе с поведением и состоянием тела.
Это различие важно для двух привычных способов изучать мозг. Запись активности показывает, что происходило с нейронами во время задачи. Вмешательство, например временное подавление участка, проверяет, как возмущение системы меняет поведение. Но ни запись, ни вмешательство сами по себе не дают готового ответа на вопрос, какую именно операцию выполняет выбранная область.
Когда схема «вход — преобразование — выход» работает
Когда схема «вход — преобразование — выход» работает. В некоторых цепях анатомия и задача достаточно специализированы, а обработку можно приближённо представить как последовательность этапов. Сигнал проходит через несколько звеньев, и на каждом его свойства меняются. Тогда исследователь может сопоставить активность звена с его местом в цепи и проверить, что произойдёт, если нарушить его работу.
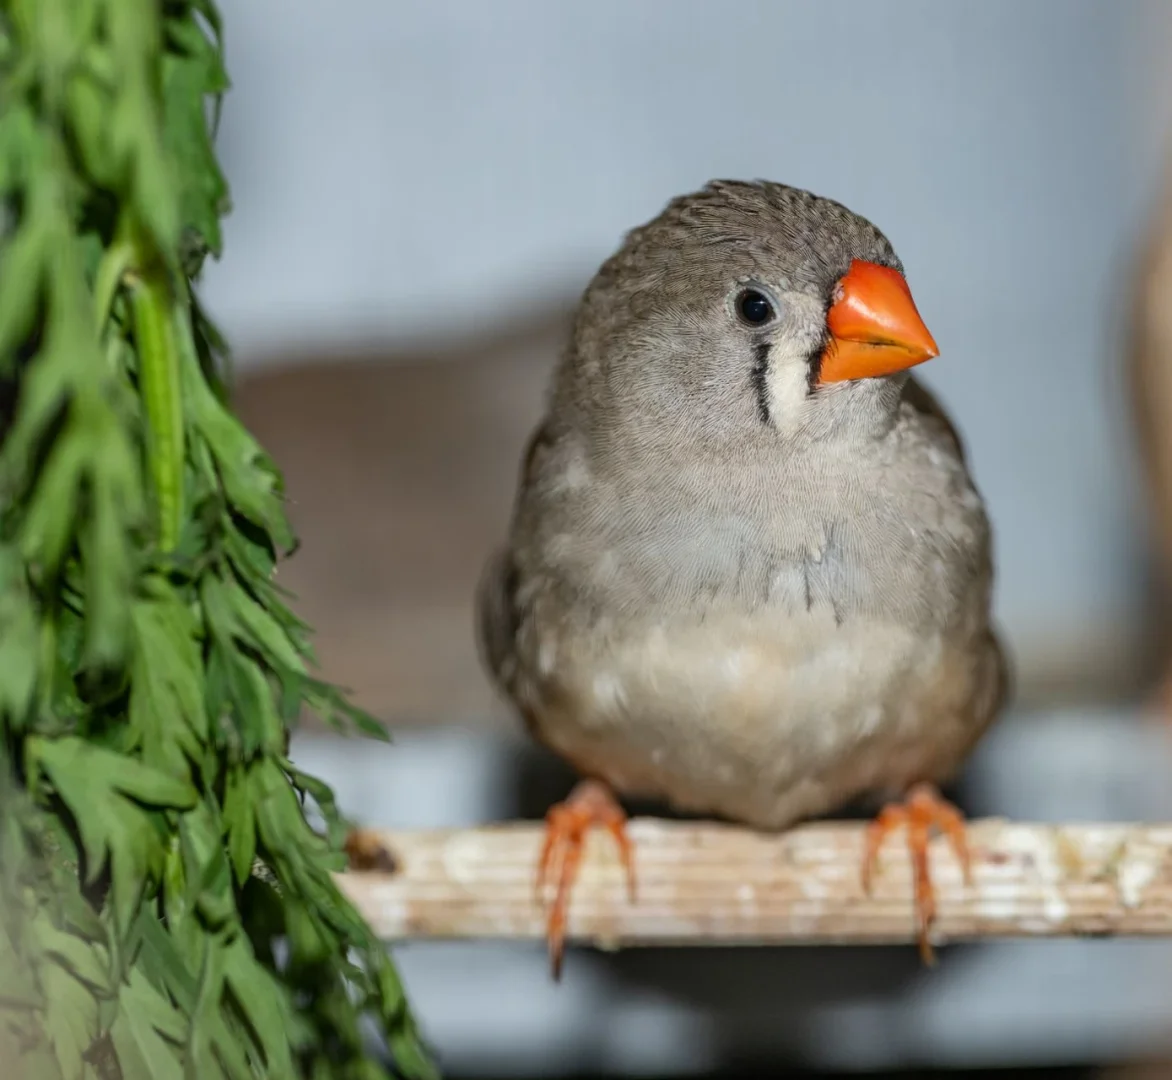
Когда схема «вход — преобразование — выход» работает. Нейробиолог Бенс Ёльвецки сопоставляет такие примеры с сетчаткой и цепями, управляющими пением зебровых амадин, с которыми он работал. Им он противопоставляет более гибкие системы коры и стриатума. В эссе это методологический аргумент, а не описание отдельного эксперимента: специализированные контуры легче разложить на этапы, тогда как одни и те же корковые сети могут участвовать в разных задачах и контекстах. Эссе вышло в The Transmitter 19 октября 2026 года. Оно не проходило рецензирование и не заменяет первичные исследования.
В петле активность зависит от того, что уже произошло
В петле активность зависит от того, что уже произошло. В рекуррентной сети выход одного этапа возвращается в систему и влияет на последующую активность. В контур при этом поступают сигналы от других областей мозга и тела. Поэтому зарегистрированная активность может одновременно отражать задачу, текущую фазу движения, сенсорную обратную связь и внутреннюю динамику сети.
Вместо конвейера здесь можно представить разговор, где одна реплика меняет смысл следующих. Но аналогия не должна заслонять механизм: нейронная активность зависит от повторного прохождения сигналов по связанным цепям и от обратной связи с телом. Если две области получают общий поток сигналов, их активность может выглядеть похоже, хотя вклад в поведение у них разный. Сходство записей ещё не означает, что области выполняют одну и ту же функцию.
Что показывает острое вмешательство
Что показывает острое вмешательство. Рецензированная работа Тимоти Отчи и коллег, опубликованная в Nature, проверяла, насколько осторожно нужно трактовать кратковременное подавление нейронной активности. Авторы изучали моторную кору крыс и ядро Nif у зебровых амадин, сопоставляя временное подавление с постоянным повреждением соответствующего участка. Полный текст статьи доступен по подписке. Поэтому здесь выводы ограничены сведениями на странице журнала и в аннотации.
Что показывает острое вмешательство. Временное подавление моторной коры у крыс ухудшало выученные движения, а подавление Nif у амадин нарушало выученное пение. После постоянного повреждения этих участков соответствующие навыки могли восстановиться. В опытах с птицами авторы также обнаружили, что подавление Nif остро влияет на работу нижележащего ядра HVC, участвующего в управлении пением. Они заключили, что кратковременное вмешательство может влиять на поведение не только через нарушение работы выбранной области: могут измениться и функции связанных с ней звеньев. После постоянного повреждения система со временем способна перестроиться.
Отсюда следует ограничение: если сразу после подавления участка поведение нарушилось, это показывает реакцию связанной системы на вмешательство, но не обязательно раскрывает отдельное вычисление целевого участка. И наоборот, восстановление навыка после повреждения не означает, что участок никогда не участвовал в его выполнении. Результат зависит от способа воздействия и от времени, которое сеть получила на приспособление.
Зачем изучать искусственную рекуррентную сеть
Зачем изучать искусственную рекуррентную сеть. В препринте «Глубокая нейроэтология виртуальной крысы» Джош Мерел и коллеги обучили виртуальную крысу с 38 управляемыми степенями свободы выполнять четыре задачи: перепрыгивать промежутки, собирать объекты в лабиринте, выбираться из чашеобразной области и дважды касаться объекта с заданным интервалом. Одна рекуррентная модель обучалась всем задачам. Агент не получал отдельного сигнала о том, какая задача активна, и должен был определять её по зрительным входам.
Авторы сопоставили активность разных слоёв модели с движениями виртуального тела, а затем подавляли или активировали выбранные группы искусственных нейронов. В двух проанализированных версиях модели подавление нейронов слоя, расположенного ближе к моторному выходу, сильнее мешало некоторым движениям, чем подавление нейронов центрального слоя. Эффект стимуляции тоже зависел от состояния модели и позы виртуального тела. Так видно, как функция группы нейронов может проявляться по-разному в зависимости от контекста и её места в системе.
Виртуальная крыса не доказывает, что мозг устроен так же. Работа является препринтом, а не рецензированной статьёй; архитектура модели и все её внутренние состояния известны, чего нельзя сказать об опытах с живым мозгом. Авторы отдельно отмечают, что у виртуального тела гораздо меньше исполнительных механизмов и датчиков осязания, чем у настоящей крысы, а зрение устроено иначе. У модели также нет обонятельных, слуховых и вибриссных сигналов. Эта работа позволяет проверять методы анализа в системе, где можно наблюдать почти всё, но её выводы нельзя напрямую переносить на биологические цепи.
Как точнее читать записи и результаты вмешательств
Как точнее читать записи и результаты вмешательств. Запись активности выявляет закономерность, но сама по себе не устанавливает, что именно вызывает поведение. Если активность нейронов меняется вместе с движением, она может отражать само движение, задачу, сенсорную обратную связь или сочетание этих факторов. Чтобы различить объяснения, нужно сопоставлять записи с поведением и контекстом, проверять гипотезы разными способами и учитывать устройство связанных цепей.
Вмешательство добавляет причинную проверку, но её смысл тоже ограничен: важно, какой участок затронут, насколько широко распространилось воздействие, когда его применили и успела ли сеть перестроиться. Более подробный разбор того, почему для стимуляции мозга важны не только координаты электрода, но и проходящие рядом связи, есть в статье о роли проводящих путей при глубокой стимуляции мозга.
Рекуррентность не делает отдельные участки мозга непознаваемыми. Она меняет требования к доказательствам: одной записи недостаточно, а эффект точечного воздействия нельзя автоматически приписать только выбранной области. Надёжнее рассматривать активность вместе с поведением, состоянием тела и устройством связанных цепей. Вывод при этом нужно ограничивать той задачей и тем воздействием, которые действительно изучались.
Источники
- Otchy T. M. et al. Acute off-target effects of neural circuit manipulations. Nature, 528, 358–363 (2015). Рецензированная статья; полный текст доступен по подписке.
- Merel J. et al. Deep neuroethology of a virtual rodent. arXiv:1911.09451 (2019). Препринт; полный текст доступен на arXiv.
- Ölveczky B. When traditional mechanistic approaches no longer work. The Transmitter, 19 октября 2026 года. Авторское эссе, не первичное исследование.
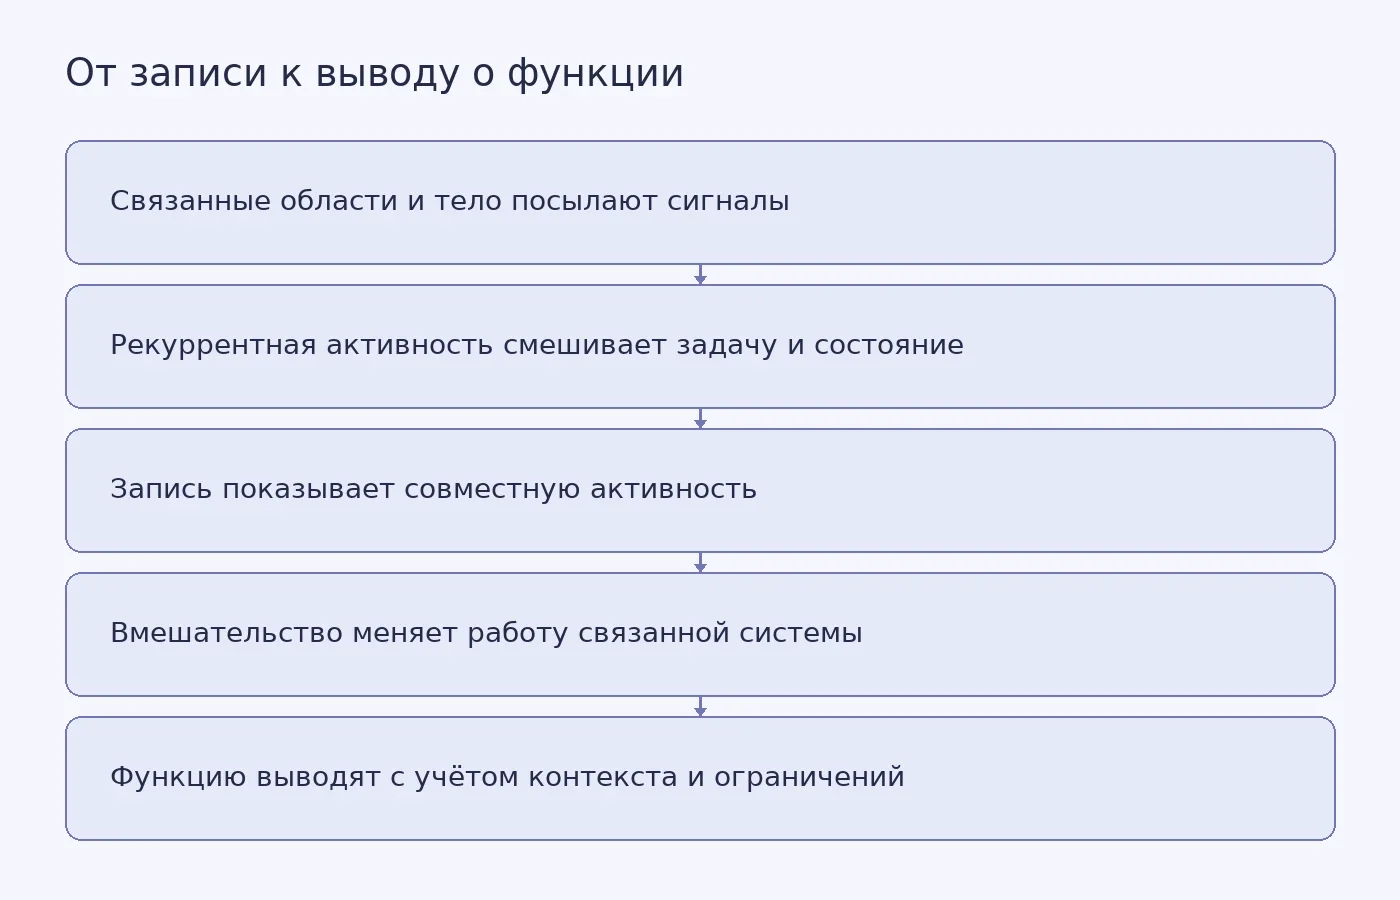
Фото: Petr Ganaj / Pexels


Похожие статьи
 Полезные материалы
10
мин
04.10.2026
Стареющий мозг может не только терять функции, но и менять стратегию памяти
Пожилой человек пересказывает внуку не то, во что был одет сосед на прошлой неделе, а то, как этот сосед вёл себя двадцать лет назад и что из этого вышло. Молодой собеседник запомнит детали встречи, старший — её смысл. Нейробиологи давно замечали этот сдвиг: с возрастом эпизодическая память, за кото
 Полезные материалы
11
мин
27.02.2026
1
Как студенту завершить работу с источниками в конце года: что делать, если доступ к библиотекам закрывается на праздники
Декабрь – это критически важный месяц для дипломной работы: студенты завершают сбор и систематизацию информационных источников. Перед новогодними праздниками доступ к читальным залам и библиотекам резко сокращается, поэтому получить редкие книги или консультации по подбору литературы сводится
 Полезные материалы
12
мин
21.09.2026
1
Как работать над дипломом без данных предприятия
Из-за отсутствия данных конкретного предприятия, у дипломантов часто возникают проблемы с практической частью диплома. Нехватка фактических финансовых показателей, внутренней отчетности, результатов опросов сотрудников или актуальной информации о производственных процессах – это распространенн
 Полезные материалы
11
мин
12.10.2026
Как объяснять квантовую физику метафорами и не потерять саму физику
Фотон в ранней Вселенной не летел сквозь пустоту. Он находился в плотной плазме, постоянно сталкивался с частицами, особенно с электронами, и потому не мог свободно распространяться. С этой физической последовательности Чанда Прескод-Вайнстайн начинает опубликованный фрагмент книги The Edge of Space
 Полезные материалы
6
мин
17.10.2026
ИИ спроектировал протеазы: насколько точны новые «молекулярные ножницы»
Белковая цепь похожа на длинную нить, в которой важен порядок каждого звена. Протеаза разрезает эту нить, но сначала должна распознать нужный участок и расщепить связь именно в нём. Две работы, опубликованные в Nature, показывают, что белки с заданной ферментативной активностью можно проектировать с
 Полезные материалы
13
мин
10.10.2026
Миллиард или банкротство: почему максимизация вероятности стать миллиардером ведёт к разорению
На семинаре о личных финансах кто-то поднимает руку и говорит: откладывать 20% дохода, следить за комиссиями, держать индексные фонды — всё это хорошо, но миллиардером так не станешь. Возражение выглядит наивным, и его легко отмахнуть. Но у него есть точная математическая версия, и она приводит к не
Последние новости и статьи
 Полезные материалы
5
мин
21.10.2026
Как сделать рабочие встречи доступнее для нейроотличных сотрудников
Совещание начинается без повестки, темы быстро сменяют друг друга, а участники не знают, когда их попросят высказаться. Один человек теряет нить разговора, другому мешают уведомления или яркий свет. Это условный пример, но составляющие его ситуации перечислены в практических рекомендациях Джейми Уай
 Полезные материалы
8
мин
21.10.2026
Пролапс после беременности: какие симптомы важны и как выбирают помощь
После долгого дня может появиться тяжесть в тазу или чувство, будто во влагалище что-то давит вниз. Такое бывает при пролапсе тазовых органов, но одной этой жалобы недостаточно для диагноза. И наоборот: при осмотре смещение органов иногда обнаруживают у женщин, которых ничего не беспокоит. Пролапс в
 Полезные материалы
7
мин
21.10.2026
Живой архив в кишечной палочке: что выдержали 100 поколений
Файл с рассказом Эрнеста Хемингуэя «Очень короткий рассказ» занимал 3288 байт. Исследователи закодировали его в 41 последовательность ДНК, собрали их в плазмиду и внесли в бактерию Escherichia coli. После выращивания бактерий до 100 поколений учёные прочитали последовательности плазмиды. В этих усло
 Наука
3
мин
20.10.2026
Модель оценила пользу скрининга рака печени при риске от 0,45%
Исследователи Mass General Brigham рассчитали, что скрининг рака печени может быть полезен людям с циррозом, связанным с алкоголем, уже при годовом риске заболевания от 0,45%. В сообщении об исследовании ориентиром для обследования назван риск выше 1%. Результаты опубликовали в журнале Clinical Gast
 Наука
3
мин
20.10.2026
Фокусированный ультразвук снизил оценку бреда в пилотном исследовании с 10 участниками
В исследовании, опубликованном 20 октября 2026 года в журнале npj Acoustics, участвовали десять амбулаторных пациентов с шизофренией или шизоаффективным расстройством. После сеанса фокусированного ультразвука их оценка выраженности бреда снизилась. Исследователи из США сравнили активную стимуляцию с
 Вузы
2
мин
20.10.2026
В Алматы проверили три вуза после сообщений о минировании
20 октября 2026 года экстренные службы обследовали три университета в разных районах Алматы после сообщений о возможном минировании. Опасных предметов не нашли, информацию об угрозе полиция не подтвердила, сообщает Informburo.kz.Что проверили службыПосле сообщений о возможном минировании экстренные