


Содержание статьи
Наука
03.11.2026
03.11.2026
5
мин
Бактерии, археи и эукариоты пользуются одним и тем же набором ферментов, чтобы пришивать аминокислоты к транспортным РНК. Один из них, изолейцил-тРНК-синтетаза (IleRS), узнаёт тРНК с изолейцином и цепляет к ней нужную аминокислоту. Группа исследователей из Института науки Токио (Япония), Загребского университета (Хорватия) и ETH Zürich (Швейцария) разобралась, как за миллиарды лет менялось устройство этого фермента и почему одни его варианты работают быстрее других. Работа вышла в Nature Communications 12 октября 2026 года.
Авторы собрали базу из 97 678 последовательностей IleRS, построили филогенетические деревья по отдельным доменам фермента и определили кристаллическую структуру IleRS2 из Priestia megaterium в комплексе с тРНК из E. coli и АТФ, а затем проверили выводы мутагенезом и кинетикой. Вместо привычных двух групп (IleRS1 и IleRS2) они выделили три эволюционные ветви: IleRS1, IleRS2 и ранее не описанную глубоко ветвящуюся группу архейных ферментов, которую назвали IleRS-A. Традиционное деление опиралось на строение концевых доменов, узнающих антикодон, но, как выяснилось, оно не отражает реального родства.
Ключом к ускорению оказался участок под названием INS, около 80 аминокислот внутри домена ARD2. Фермент использует его, чтобы цепляться за D-петлю тРНК. В нескольких линиях прокариот этот участок терялся независимо друг от друга. Ослабление связей между INS и D-петлёй (мутации K862A и F865A) подняло каталитический оборот фермента примерно в 4 раза. Полное удаление субдомена увеличило кажущуюся константу Михаэлиса для тРНК примерно в 15 раз, но не остановило реакцию: фермент продолжал заряжать тРНК изолейцином. В клетках E. coli, где собственный IleRS1 блокировали мупироцином, мутантные варианты по-прежнему поддерживали рост бактерий, правда, вариант с полным удалением INS требовал повышенной экспрессии фермента и дополнительной тРНК.
Совсем иначе повело себя узнавание антикодона. Точечные замены R721A и R964A в участках, отвечающих за считывание триплета ГАУ, уронили скорость переноса изолейцина в 1000 раз и полностью лишили фермент способности поддерживать рост бактерий в тесте на комплементацию. То есть если потеря INS только ослабляет связывание с тРНК, то нарушение узнавания антикодона ломает сам перенос.
Скорость и точность разошлись по ветвям
Сравнение двух ферментов одной и той же бактерии Priestia megaterium показало ещё одну асимметрию. IleRS1 узнаёт варианты антикодона менее строго, чем IleRS2: тРНК с заменами G34C, U36A и U36C заряжались ферментом IleRS2 в 3–15 раз хуже, а цинк-связывающий домен IleRS1 был снисходительнее к этим заменам. Авторы предполагают здесь компромисс между точностью и скоростью, известный для трансляции в целом.
Представим условную лабораторию, которая решила бы перенести найденный приём на другой организм: скажем, попыталась бы удалить INS у цитоплазматической IleRS2 дрожжей ради более быстрого синтеза белка. По логике работы такой перенос неочевиден. У дрожжей D-петля, судя по структурам, служит элементом идентичности тРНК, и INS встраивается в узнавание этого участка. Удаление участка там должно ухудшить связывание, а не ускорить реакцию, как оно происходит у бактерий. Авторы прямо отмечают, что экспериментов по комплементации в эукариотических клетках они не ставили и что цитоплазматическая IleRS эукариот относится к типу 2, а дрожжевой фермент слабо чувствителен к мупироцину, так что такой тест был бы затруднён.
Ограничения работы тоже сформулированы честно. Кристаллическая структура получена при разрешении 5,3 Å, поэтому точные контакты боковых цепей с тРНК авторы выводили по гомологии с дрожжевой IleRS2 и подтверждали мутагенезом, а не наблюдали напрямую. Филогенетическое дерево укореняли по ValRS; вариант с LeuRS давал менее устойчивую картину. Биохимически охарактеризовали лишь несколько ферментов ветви IleRS-A, и один из них, MaIleRS-A, неожиданно оказался устойчив к мупироцину вопреки ожиданиям. Тест на комплементацию проводили в E. coli с повышенной экспрессией чужого фермента, что позволяет трактовать его двояко: и как ненужность INS, и как компенсацию ослабленной функции.
Для российского абитуриента или студента эти данные важны скорее как пример того, как фундаментальная эволюционная биология объясняет устройство молекулярной машины. Если тема синтеза белка, эволюции ферментов или структурной биологии ложится в основу курсовой, диплома или научной статьи, разбор таких работ требует аккуратной работы с первоисточником, структурными данными и кинетическими параметрами. Здесь может пригодиться помощь в подготовке научной статьи: сбор и разбор публикаций, выверка цифр и корректная подача ограничений исследования. Гарантий по результатам никто дать не может, но системная работа с источниками снижает риск фактических ошибок.
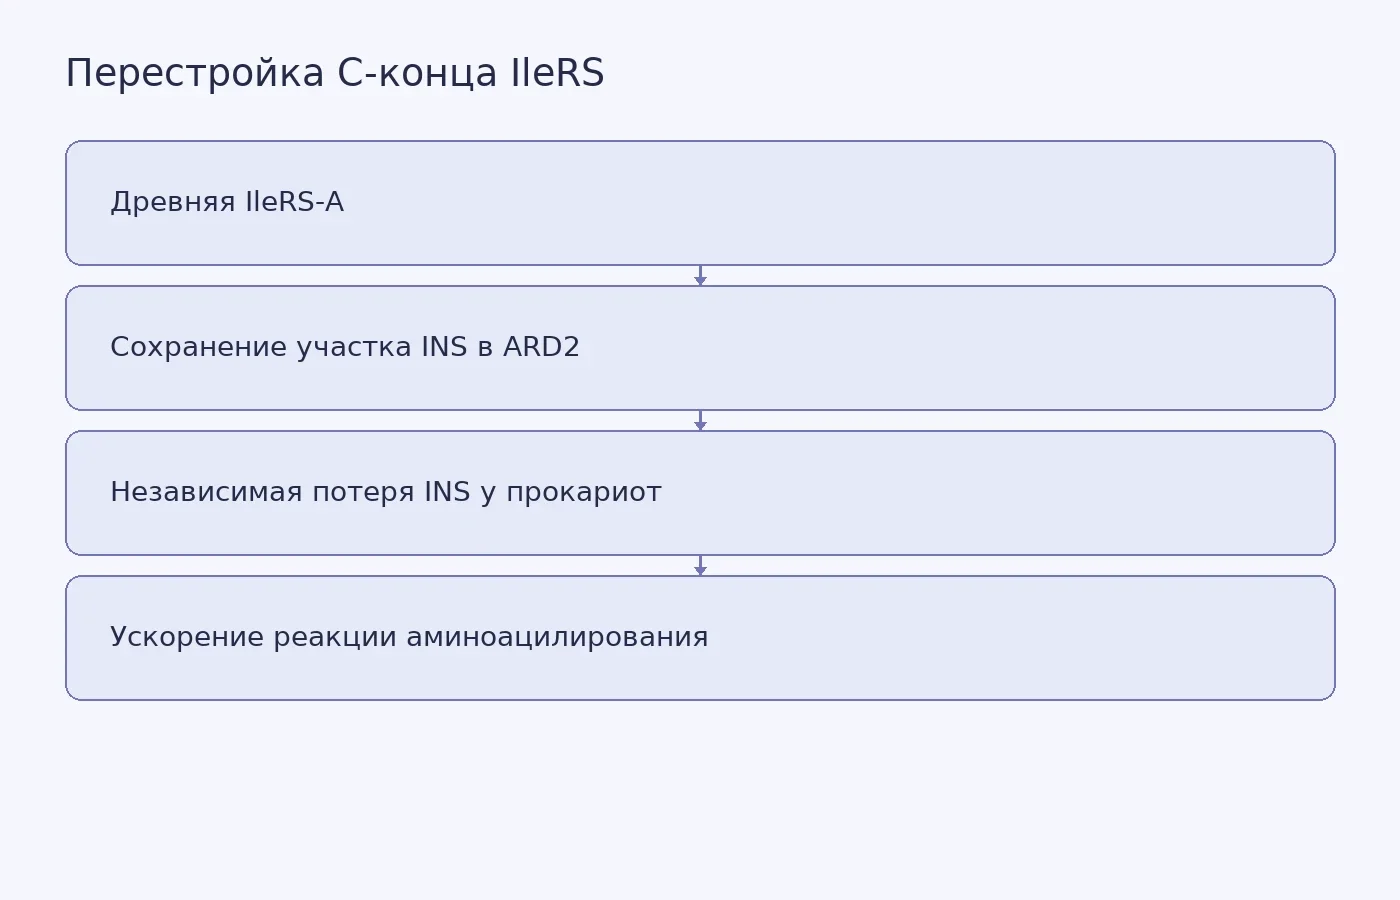
Фото: Google DeepMind / Pexels
Похожие статьи
 Наука
5
мин
04.10.2026
Локальный pH у электродов поднял селективность синтеза с 16% до 97%
Исследователи из Сеульского национального университета под руководством Чэюна Рю (Jaeyune Ryu) построили электрохимический реактор, в котором кислотность измеряют не в объёме раствора, а в тонком слое у самой поверхности электрода. Как сообщил университет 3 октября 2026 года, такая перестройка подня
 Наука
3
мин
13.10.2026
Бактериальная защита от вирусов синтезирует повторы ДНК по принципу теломеразы
12 октября 2026 года журнал Nature опубликовал исследование бактериальной защитной системы DRT10. Она использует РНК как матрицу, чтобы создавать повторяющиеся участки ДНК. Авторы изучили комплекс с помощью криоэлектронной микроскопии и биохимических экспериментов и обнаружили сходство этого процесс
 Наука
5
мин
03.11.2026
Фермент бифидобактерий отрезает сахара от коротких пептидов грудного молока
Бифидобактерии в кишечнике младенца получают доступ к сахарам, которые в грудном молоке прикреплены к коротким обрывкам белков. Фермент, отрезающий эти сахара, описали Люси Крауч из Бирмингемского университета и её коллеги, среди них Рамон Уртадо-Герреро из Университета Сарагосы. Работа вышла 2 нояб
 Наука
4
мин
29.10.2026
L-аргинин вернул колистину активность против устойчивых бактерий в опытах на мышах
Китайские микробиологи сообщили, что сочетание колистина с аминокислотой L-аргинином снова делало уязвимыми бактерии, несущие гены устойчивости к этому антибиотику. Проверяли это и в лабораторных опытах, и на мышах с инфекцией брюшины. О результатах 29 октября 2026 года сообщило Американское обществ
 Наука
4
мин
03.11.2026
Графеновая «броня» для анода ускорила зарядку натрий-ионных батарей без потери ресурса
Химики из Фуданьского университета в Шанхае собрали анод для натрий-ионной батареи из ультратонких нанослоёв диоксида титана, каждый из которых завёрнут в графеновую оболочку. Результат они описали в Journal of the American Chemical Society 3 ноября 2026 года; Chemistry World пересказал работу по пр
 Наука
3
мин
14.10.2026
Две модели ИИ помогли находить правдоподобные пути синтеза редких веществ
Исследователи Microsoft Research вместе с коллегами из Novartis и GSK представили RetroChimera, систему для планирования химического синтеза. В статье, опубликованной в журнале Nature 21 сентября 2026 года, авторы сообщают, что органические химики чаще предпочитали её прогнозы справочным реакциям и
Последние новости и статьи
 Наука
4
мин
03.11.2026
Кровь задолго до симптомов: что показал тест на ptau-217 у почти 3 000 пожилых людей
У людей без жалоб на память очень высокий уровень белка ptau-217 в крови связан с резко повышенным риском болезни Альцгеймера в следующие десять лет. К такому выводу пришла группа исследователей из Mass General Brigham во главе с нейробиологом Рэйчел Бакли: они проанализировали данные почти 3 000 по
 Наука
3
мин
03.11.2026
Плотная сейсмическая сеть выявила два магматических резервуара под Килауэа
Группа исследователей под руководством Lin et al. получила сейсмическое изображение магматической системы под вершиной Килауэа и различила два отдельных резервуара: один под кратером Халемаумау в главной кальдере, другой под южной кальдерой. Об этом сообщает Eos со ссылкой на статью в Journal of Geo
 Образование
5
мин
03.11.2026
Педагоги детского сада КФУ собрали заказ в «Тихом кафе» из карточек PECS
В специальном (коррекционном) детском саду для детей с расстройствами аутистического спектра Казанского федерального университета «Мы вместе» педагогический коллектив провёл занятие «Тихое кафе. Национальная кухня Татарстана». Пресс-служба КФУ сообщила о нём 3 ноября 2026 года. Меню было визуальным:
 Вопросы студентов
34
мин
03.11.2026
Как подготовить техническую монографию: воспроизводимость, расчеты, схемы и описание результатов
Техническую монографию удобно строить как путь от исследовательского вопроса к обоснованному выводу: показать предпосылки, исходные данные, единицы, расчёты, код и ограничения. Если нужна помощь с собственной исследовательской рукописью, можно обсудить написание монографии на заказ по вашей теме и и
 Научные статьи
33
мин
03.11.2026
Как написать монографию по литературе или искусству: корпус, метод анализа и структура
Монография по литературе или искусству начинается с определённого корпуса: какие тексты и версии вы читаете, какие произведения и изображения рассматриваете, какой вопрос по ним решаете. Ниже показано, как связать карточки объектов, метод анализа и главы собственной рукописи; в учебном примере полно
 Диссертации по темам
29
мин
03.11.2026
Как написать историческую монографию: исследовательский вопрос, источники, историография и главы
Историческую монографию часто представляют как длинный текст, который начинается с темы и заканчивается списком литературы. В этом руководстве начнём с главного исследовательского вопроса и соотнесём с ним источники, историографию и главы. Это предлагаемый способ организации работы; конкретная книга