В любом лесу муравей, дерево и плесень заняты разным делом: одни строят органику, другие её съедают, третьи разбирают до простых молекул, и круг замыкается. Синья Като (Shinya Kato), доцент Института интегрированных радиационных и ядерных исследований Киотского университета (KURNS), взглянул на этот привычный расклад и спросил себя: не могло ли само устройство первых химических сред подсказать подобное разделение труда на заре жизни?
Так появилась концептуальная работа в журнале The Science of Nature [S4]. В ней нет ни одной новой пробирки, нет реконструкции ранней Земли и нет доказательств, что последний универсальный общий предок (LUCA) вышел из трёх метаболических линий. Вместо этого Като выдвигает проверяемую гипотезу: возможно, первые химические сети стали сложными не благодаря одному-единственному «колыбельному» ландшафту, а благодаря кооперации нескольких. И прилагает набор экспериментальных протоколов, с помощью которых эту кооперацию можно было бы отследить.
Ценность подхода не в том, что он «правильнее» остальных, а в том, что он проверяем. Разбор статьи Като — хороший повод увидеть, как изящную идею заземляют до конкретной исследовательской программы и где проходит граница между тем, что уже показано, и тем, что пока остаётся фантазией.
Почему одной среды маловато
Гидротермальные источники давно числятся среди фаворитов у тех, кто ищет колыбель жизни. Резкие окислительно-восстановительные градиенты, химическая энергия, активные минералы — всё это звучит серьёзно. Но у тех же источников есть и другая сторона: высокие температуры, непрерывное движение флюидов и резкие перепады условий отлично разрушают то, что только-только построилось. Като напоминает: даже в современных клетках сравнительно небольшой тепловой или осмотический стресс способен порвать мембрану, развернуть макромолекулу или стереть накопленную структурную информацию [S4, ссылаясь на Mazur 1963 и Hubálek 2003].
Конечно, не все гидротермы одинаково горячи. Щелочные серпентинитовые системы вроде поля Lost City могут похвастаться стабильным pH и пониженными температурами. Но постоянный обмен флюидов и там означает, что продукты реакции то и дело вымываются или превращаются во что-то другое.
Лёд, наоборот, умеет концентрировать. При медленном замерзании растворённые вещества выталкиваются растущими кристаллами в микрокарманы жидкости. Молекулы там сближаются, реакции ускоряются, диффузия замедляется — и сложная конструкция может накапливаться, а не размываться. Эксперименты, на которые ссылается Като, показывают отдельные шаги: активированные рибонуклеотиды в эвтектических фазах льда соединяются в более длинные цепочки [S4, ссылаясь на Monnard et al. 2003], а уже готовый рибозим РНК-полимеразы сохраняет работоспособность в ледяных жидких включениях [S4, ссылаясь на Attwater et al. 2010].
Но здесь легко увлечься. Ни один из этих опытов не демонстрирует самопроизвольное образование РНК из простого сырья. Ни один не показывает, что продукты продержатся сколь угодно долго после многих циклов таяния и замерзания. При оттаивании молекулы рискуют просто разбавиться и потеряться. Като формулирует осторожно: «Результаты подтверждают концентрирование и отдельные синтетические или каталитические реакции в испытанных условиях. Они не устанавливают спонтанное образование РНК из простого сырья, неограниченное удержание продукта после циклов заморозки-оттаивания или устойчивую эволюцию автономной реакционной сети» [S4].
И тут возникает главная догадка: что, если лёд и гидротермы не соперничают за звание «истинной колыбели», а работают в паре? Одна среда концентрирует и строит, другая разбирает крупные молекулы на части, пригодные для повторного использования. Перенос веществ между ними мог запустить процессы, которые трудно поддерживать внутри одной среды.
«Производители», «потребители» и «разлагатели» — без волшебства
Като заимствует экологические термины и сразу лишает их метафорической магии. «Производитель-подобная» функция — это чисто химическое образование или усложнение органических продуктов из заданных реагентов. «Потребитель-подобная» — использование уже готовых органических соединений в следующих реакциях. «Разлагатель-подобная» — расщепление сложных молекул на мелкие, которые могут вернуться в сеть.
Это эвристические аналогии, а не описание абиотических метаболизмов. Никто не утверждает, что ледяные микроокружения уже были живыми «автотрофами», а гидротермы — «редуцентами». Като особенно настаивает: разложение здесь — это гидролиз пептидной связи или декарбоксилирование кетокислоты, а не доказанный энергосберегающий метаболизм. Скорости и продукты таких реакций зависят от конкретных условий. Синтез и разложение метаболических предшественников могут идти в одном и том же богатом железом эксперименте [S4, ссылаясь на Muchowska et al. 2019] — и это скорее приглашение задуматься, чем готовый сценарий.
Отличие финальной статьи от препринта [S3] здесь принципиально. Если в ранней версии Като ещё предполагал жёсткую последовательность трёх сред, то в опубликованной работе он подчёркивает: «Эти категории могут пересекаться, и называть реакцию потребитель-подобной ещё не значит демонстрировать биологическое потребление или запасание энергии. Ледяные границы, водные массы и гидротермальные системы — это кандидатные среды для проверки функций, а не эксклюзивные назначения» [S4].
Эвристика нужна не для объяснения, а для расстановки экспериментов. Она задаёт вопрос, а не ответ.
Удержание, зависимость и рециклинг — что конкретно измерять
Прежде чем описывать протоколы, Като вводит два понятия, которые делают разговор куда более земным: удержание продукта и зависимость от предшествующего химического состояния. Удержание — это просто наличие идентифицируемых соединений в жидком компартменте или на минеральной поверхности через заданный промежуток времени. Зависимость от предшествующего состояния — это изменение исхода последующей реакции по сравнению с контролем, в котором сохранённых продуктов нет [S4].
Ни то ни другое не требует ни генетического кода, ни дарвиновской эволюции. Это чисто физико-химические свойства, которые можно измерить уже сейчас, не дожидаясь сборки живой клетки в лаборатории.
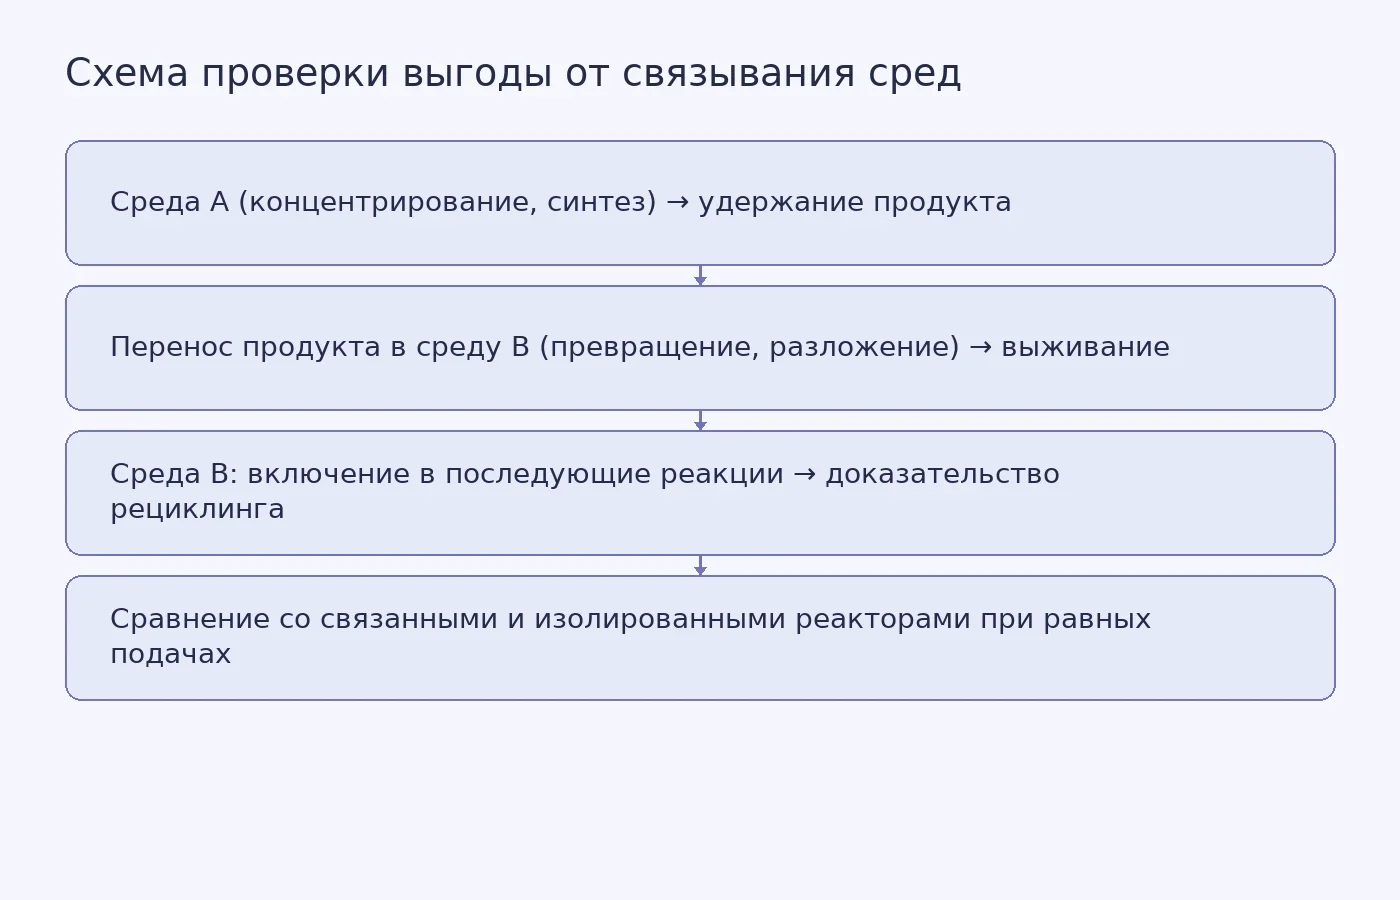
Исходя из них, Като ставит главный вопрос: даёт ли связывание сред химический выигрыш по сравнению с изоляцией? И сразу предупреждает: «Польза от связности возможна только если полезные продукты переживают транспорт и остаются реакционноспособными в принимающей среде» [S4]. Перенос должен идти быстрее, чем разрушение по пути. Кислотность, солёность, температура и концентрации реагентов на новом месте должны позволять продукту участвовать в дальнейших реакциях. Поэтому Като предлагает начать с более скромных расстояний — скажем, локального обмена возле холодных гидротермальных окраин или в сообщающихся порах осадка.
Четыре проверяемых сценария
Статья содержит не просто предложение «хорошо бы сравнить», а чёткий набор экспериментальных линий, оформленных как проверяемые предсказания.
Связанные и изолированные абиотические реакторы
Один реактор создаёт условия для концентрирования и удержания продуктов (например, циклы заморозки-оттаивания). Другой — условия для химического превращения (повышенная температура, минеральные катализаторы). В связанном варианте продукты из первого реактора переносятся во второй; в контроле оба реактора получают те же количества сырья и энергии, но работают изолированно. Отслеживают конкретные соединения на каждой стадии: выживают ли перенесённые молекулы, включаются ли в последующие продукты, сохраняется ли активность дольше, чем в изолированной системе. Отдельные контроли учитывают влияние простого разбавления при переносе и время пребывания в каждом реакторе [S4].
Рециклинг — не мелкие осколки
Для вывода о рециклинге мало найти обломки исходной молекулы. «Польза от рециклинга требует доказательства повторного использования: одного восстановления мелких продуктов распада недостаточно» [S4]. Нужно показать, что продукты разложения действительно входят в новый синтез — или, наоборот, что их удаление перед следующим циклом заметно ухудшает выход по сравнению с контролем, где их вернули обратно.
Повторные циклы заморозки-оттаивания
Системы на границе лёд-вода можно тестировать на удержание продукта и реакционную активность после многих циклов. Контролем служат незамороженные образцы с теми же исходными реагентами. Измеряют количество продукта, распределение длин молекул (если речь о полимерах) и каталитическую активность. Зависимость от предшествующего состояния проверяют, удаляя или снова вводя сохранённые продукты перед очередным циклом. «Одна лишь устойчивость не доказывает наследственность или эволюцию», — напоминает Като [S4].
Современные термофилы — проверка экологии, а не истории
Можно сравнить термофилов из современных гидротерм с родственными таксонами из более холодных мест по способности к гидролизу и деградации органики, контролируя подачу субстрата и филогению. Но любое обогащение той или иной функцией будет описывать современную экологию, а не доказывать, что первой метаболической ролью гидротерм было именно разложение [S4].
Иллюстративная модель и чего в ней нет
В статье есть формула, построенная на простом балансовом уравнении dM/dt = P − kM, где M — накопление молекул, P — скорость их поступления, а k — эффективная потеря (разрушение, разбавление, вынос потоком). Като приводит три иллюстративные кривые для P = 1 и k = 0,05; 0,2; 0,8 в произвольных единицах. Ни одна из них не привязана к конкретной среде, и он прямо говорит: «Модель не содержит переменных для каталитической обратной связи, хранения информации или эволюционного изменения» [S4]. Это не симуляция протоклетки, а простое напоминание: накопление молекул — гонка между приходом и уходом, и второй фактор мы часто упускаем.
Что остаётся за скобками
Като завершает статью не фанфарами, а списком известных ограничений. Доступность льда на ранней Земле не установлена. Реальный перенос между полярными шапками и глубоководными жерлами никто не измерял. Эффективность реакций зависит от конкретного субстрата. И самый принципиальный пробел: никакого перехода от химической устойчивости к наследственному метаболизму — а значит, и к эволюции — в работе не показано [S4].
LUCA выступает в ней не как первое живое существо, а как популяция, уже успевшая вобрать в себя множество биохимических ухищрений [S4, ссылаясь на Weiss et al. 2016]. Могла ли эта интеграция быть результатом слияния линий, вышедших из трёх сред? Возможно. Но мозаика генов у последнего общего предка сама по себе не различает симбиоз, горизонтальный перенос генов или последующее привлечение ферментов из других источников. «Одна лишь мозаика не диагностирует интеграцию трёх предложенных экологических ролей», — предупреждает Като [S4].
Ровно поэтому надо отделять две вещи: красивое эссе об экологических параллелях и строгий план экспериментов. Эссе может вдохновлять, но проверяется только второе. Подход Като, по сути, предлагает относиться к происхождению жизни как к инженерной задаче с несколькими реакторами: хочешь заявить, что среда А и среда Б работали вместе — покажи, что совместный реактор даёт измеримый выигрыш, а не просто другие продукты. И если в каком-то диапазоне условий выигрыша нет, честное «не сработало» — это тоже полезный результат, который сужает поле гипотез.
Для студентов, планирующих собственное исследование, здесь есть отличный урок: гипотеза становится научной не когда она красива, а когда она предсказывает исход конкретного опыта, включая неудачу. Материал о том, как устроены подобные предсказания и какие контроли нельзя забывать, можно найти, например, в нашей статье «Пилотное исследование: что проверить перед основным этапом» — там разобран тот же принцип на уровне анкет и методик.
Литература
Kato, S. (2026). Rethinking hydrothermal vents: a structural ecology perspective on the early emergence of metabolic roles. The Science of Nature, 113(6), 139. https://doi.org/10.1007/s00114-026-02189-x [S2, S4]
Kato, S. (2026). Rethinking hydrothermal vents: a structural ecology perspective on the early emergence of metabolic roles (Version 4). Zenodo. https://doi.org/10.5281/zenodo.20772004 [S3]
Mazur, P. (1963). Kinetics of water loss from cells at subzero temperatures and the likelihood of intracellular freezing. The Journal of General Physiology, 47(2), 347–369.
Hubálek, Z. (2003). Protectants used in the cryopreservation of microorganisms. Cryobiology, 46(3), 205–229.
Weiss, M. C., Sousa, F. L., Mrnjavac, N., Neukirchen, S., Roettger, M., Nelson-Sathi, S., & Martin, W. F. (2016). The physiology and habitat of the last universal common ancestor. Nature Microbiology, 1(9), 16116.