


Содержание статьи
Отдых помогает крысам быстро переучиваться: что показало подавление гиппокампальных рипплов
Полезные материалы
09.10.2026
09.10.2026
13
мин
Крыса в восьмирукавном радиальном лабиринте уже несколько недель знает, какой запах ведёт к какой кормушке. Потом экспериментатор меняет пары «запах — место». В первой сессии после замены животное тычется наугад: доля верных проб держится около случайной. Затем следует час отдыха в отдельной камере вне лабиринта. Когда крыса возвращается, она уверенно идёт к новым кормушкам, будто переучилась мгновенно. Именно этот перелом между «не знаю» и «знаю» исследователи из Йельской школы медицины связали с короткими высокочастотными колебаниями в гиппокампе и проверили связь причинно, временно подавляя эти колебания.
Работа Бабурама Бхаттараи и Джорджа Драгоя вышла в Nature Communications (том 17, статья 9694; DOI 10.1038/s41467-026-77318-1). Статья рецензирована, опубликована в открытом доступе 3 сентября 2026 года; рукопись поступила 8 декабря 2025 года и была принята 21 августа 2026 года. Пресс-релиз Йельского университета, распространившийся через Medical Xpress 7 октября 2026 года, даёт цитаты авторов и бытовую рамку, но не заменяет статью. Ниже я опираюсь на текст самой публикации и отделяю её результаты от редакционного пересказа.
Задача, в которой старая схема мешает и помогает одновременно
Крыс-самцов обучали шести парным ассоциациям «сигнал — место» (в оригинале cue-place paired associations, PA). В лабиринте было восемь рукавов: шесть вели к кормушкам с едой определённого вкуса, два оставшихся служили стартовыми площадками, где предъявляли запаховый сигнал. Полное первоначальное обучение заняло 30 дней, растянутых на 6–8 недель. К концу тренировки животные держали результат выше 70% верных проб и меньше 1,5 ошибки на пробу три дня подряд.
Дальше начинается главное. Пары меняли: сначала три из шести, потом оставшиеся три, затем все шесть сразу. При этом часть правил оставалась неизменной — например, не заходить в один рукав дважды за пробу и не идти туда, где награда была в предыдущей пробе. Но этих неассоциативных правил недостаточно: при шести возможных целях угадывание даёт слишком низкую вероятность успеха. Авторы подчёркивают, что задача именно ассоциативная, и без применения ассоциативных правил её не решить.
Сравнение оказалось резким. При исходном обучении с нуля крысам требовалось 16,25 ± 2,20 сессий на освоение новых пар. После сформированной схемы — 1,08 ± 0,08 сессии (P = 1,55 × 10⁻⁴). Разница примерно в пятнадцать раз. Важная деталь: в сессии, где пары только что поменяли, животные держались на уровне случайного угадывания для изменённых пар, но хорошо помнили неизменённые. Улучшение наступало после сессии сна или спокойного отдыха в камере вне лабиринта — и касалось сразу всех новых пар.
Авторы проверили, насколько устойчива эта схема. Когда заменили все шесть пар, крысы освоили новый набор так же быстро, как при частичной замене. Это означает, что ускорение опиралось не на конкретные старые ассоциации, а на абстрактное правило связи. Отдельный контрольный день с чёрными шторами, перекрывшими обзорные ориентиры комнаты, обрушил результативность до случайного уровня. Значит, животные опирались на устойчивую аллоцентрическую карту пространства, а не на привязку локальных сигналов к собственному положению тела.
Что именно происходит в мозге
После успешного обучения крысам имплантировали электродные массивы и одновременно регистрировали активность области CA1 гиппокампа и прелимбической зоны медиальной префронтальной коры. Всего в анализ вошли 2011 нейронов гиппокампа и 762 нейрона префронтальной коры. Поведенческие сессии в лабиринте предварялись сессиями сна или отдыха в отдельной камере.
Первая гипотеза, которую авторы проверили, — прямое связывание признаков сигнала. Если бы мозг просто переносил реакцию со старого запаха на новый, связанный с той же целью, нейронные ответы на изменённые сигналы должны были бы напоминать ответы на исходные. Этого не наблюдалось. Сходство активации клеток, отвечающих на неизменённые сигналы, между базовой и ассимиляционной сессиями было заметно выше (корреляция 0,29 ± 0,02 для гиппокампа и 0,32 ± 0,03 для префронтальной коры), чем для клеток, отвечающих на изменённые сигналы (0,10 ± 0,03 и 0,21 ± 0,03 соответственно). Доля клеток гиппокампа, сохранявших реакцию на сигнал, тоже падала: 15,60 ± 3,4% для изменённых сигналов против 35,94 ± 4,6% для неизменённых (P = 7,3 × 10⁻³).
Более правдоподобной оказалась вторая гипотеза — ассоциативный вывод на основе карты. Её суть в том, что нейроны связывают не сами сигналы, а места с исходом: где награда есть и где её нет. В гиппокампе такие инвариантные к смене сигнала представления были привязаны к конкретным целям, в префронтальной коре — обобщались независимо от конкретной цели. Когда крыса в начале пробы обнюхивала сигнал на стартовой площадке, ансамбли гиппокампа предсказывали будущую верную цель. Это предсказание появлялось именно в ассимилированных сессиях, то есть после отдыха, и отсутствовало в базовых сессиях и в контрольный день с перекрытыми ориентирами. В ошибочных пробах предсказание тоже не возникало.
Авторы отдельно проверили, не объясняется ли это просто сенсорной реакцией на запах. Если бы дело было в самом сигнале, предсказание работало бы и в базовых сессиях, и при перекрытых ориентирах. Этого не было. Дополнительный внутренний контроль — добавление к шаблонам целей реакции на тот же сигнал из других блоков — не улучшил предсказание. То есть сенсорный ответ на запах не был основной причиной.
Рипплы как момент пересборки
Гиппокампальные sharp-wave ripples (SWR) — короткие высокочастотные колебания, которые наблюдаются во время сна и спокойного бодрствования. В пресс-релизе Драгои описывает их так: активность мозга во сне разбросана, но во время этих рипплов множество нейронов согласованно разряжается, и такая высокочастотная осцилляция длится всего 40–80 миллисекунд. Это цитата из пресс-релиза, а не измерение из статьи, но она помогает понять масштаб времени.
В статье авторы декодировали активность гиппокампа в периоды вокруг начала рипплов во время сна или отдыха после кодирования. Оказалось, что эти фрагменты смещены в сторону представлений о будущих траекториях и целях ассимилированной сессии, а не о базовой. Смещение усиливалось от сна перед ассимиляционной сессией к сну перед ассимилированной. В контрольные дни такого сдвига не было. Более того, в гиппокампе росла совместная активация пар клеток, отвечающих за изменённые ассоциации, — причём она не была повышена во время самой ассимиляционной сессии и появлялась именно в периодах отдыха, а затем усиливалась в следующей сессии.
Префронтальная кора вела себя иначе. Её фрагменты во время отдыха были смещены к неизменённым целям, а совместная активация гиппокампа и префронтальной коры поддерживала именно стабильные ассоциации. Авторы интерпретируют это как разделение труда: гиппокамп перестраивает новые связи, а префронтальная кора удерживает устойчивый каркас, чтобы новое и старое не мешали друг другу. Это гипотеза авторов, а не прямое измерение конфликта памяти.
Причинная проверка: рипплы отключили
Корреляция между рипплами и ускоренным обучением ещё не доказывает, что рипплы нужны. Поэтому авторы применили замкнутую электрическую стимуляцию вентральной гиппокампальной комиссуры, чтобы подавлять рипплы в момент их возникновения во время сна или отдыха после кодирования. Результат сформулирован в аннотации статьи прямо: подавление рипплов гиппокампа в этот период предотвращало ускоренное обучение на основе схемы. В пресс-релизе Драгои говорит: «Мы видели, что более сильное обучение связано с рипплами, а затем заблокировали эти рипплы и заблокировали быстрое ассоциативное обучение. Так что мы как минимум знаем, что рипплы нужны для этого быстрого обучения, похожего на озарение».
Здесь нужно быть точным. В доступном мне тексте статьи раздел с полным описанием рис. 6, где приведены конкретные числа и статистика по подавлению рипплов, обрывается. Я вижу заголовок и начало описания протокола, но не вижу самих значений. Поэтому утверждение «подавление рипплов предотвращало ускоренное обучение» я привожу так, как оно сформулировано в аннотации и заголовке рисунка, и не приписываю ему конкретных цифр, которых в доступном фрагменте нет.
Что это значит и чего это не значит
Эксперименты выполнены только на крысах-самцах. Переносить выводы на человеческое обучение напрямую нельзя, и авторы сами это оговаривают. В пресс-релизе Драгои замечает: «Это не одни и те же нейроны у разных животных, но принципы, то, как они координируют явления, переносимы с одного животного на другое». Это осторожная формулировка, и она не равна утверждению, что у людей работает тот же механизм.
Есть и методические ограничения. Полный раздел Methods и Supplementary Data в доступном тексте отсутствуют, поэтому детали статистики, размеры выборок по отдельным анализам и точные параметры стимуляции я не проверял. Число животных в разных экспериментах различается: в основном обучении участвовали 7 крыс, в анализах ассимиляции — 5. Это небольшие выборки, что типично для электрофизиологии на животных, но снижает устойчивость оценок.
Наконец, сама формулировка «перестройка старых знаний» — это интерпретация авторов. Они показывают, что нейронные ансамбли гиппокампа во время отдыха смещаются к представлениям будущей сессии и что подавление рипплов убирает поведенческий эффект. Это сильный аргумент в пользу причинной роли рипплов в конкретной задаче. Но он не доказывает, что именно так устроено озарение у человека или что любой отдых автоматически улучшает переучивание.
Практический смысл для читателя скромный, но конкретный. Если вы осваиваете новый навык на базе уже знакомого, пауза после первой попытки может быть не потерей времени, а частью процесса. В эксперименте решающим был не отдых вообще, а отдых сразу после кодирования новой информации и до проверки. При этом переносить это на расписание занятий или на подготовку к экзамену можно только как разумную аналогию, а не как доказанное правило: работа сделана на крысах, в лабиринте и с электрической регистрацией, а не на студентах за учебником.
Остаётся открытый вопрос: как именно гиппокамп выбирает, какие связи перестраивать во время риппла, а какие оставить префронтальной коре. В статье это описано как разделение функций, но механизм выбора — что запускает перестройку именно изменённых пар и почему неизменённые остаются нетронутыми — пока не раскрыт.
Источники
- Bhattarai B., Dragoi G. Offline generative network reconfiguration guides insight-like accelerated learning by assimilation into schema in rats. Nature Communications 17, 9694 (2026). DOI: 10.1038/s41467-026-77318-1. Полный текст: nature.com/articles/s41467-026-77318-1; PDF: nature.com/articles/s41467-026-77318-1.pdf.
- McCabe S. How your brain keeps learning while you rest. Medical Xpress, 7 октября 2026. Пресс-релиз Йельского университета. medicalxpress.com/news/2026-10-brain-rest.html.
Если вам нужно разобрать, как в подобных работах отделяют причинный вывод от корреляционного, посмотрите материал о том, как писать критический анализ научной статьи.
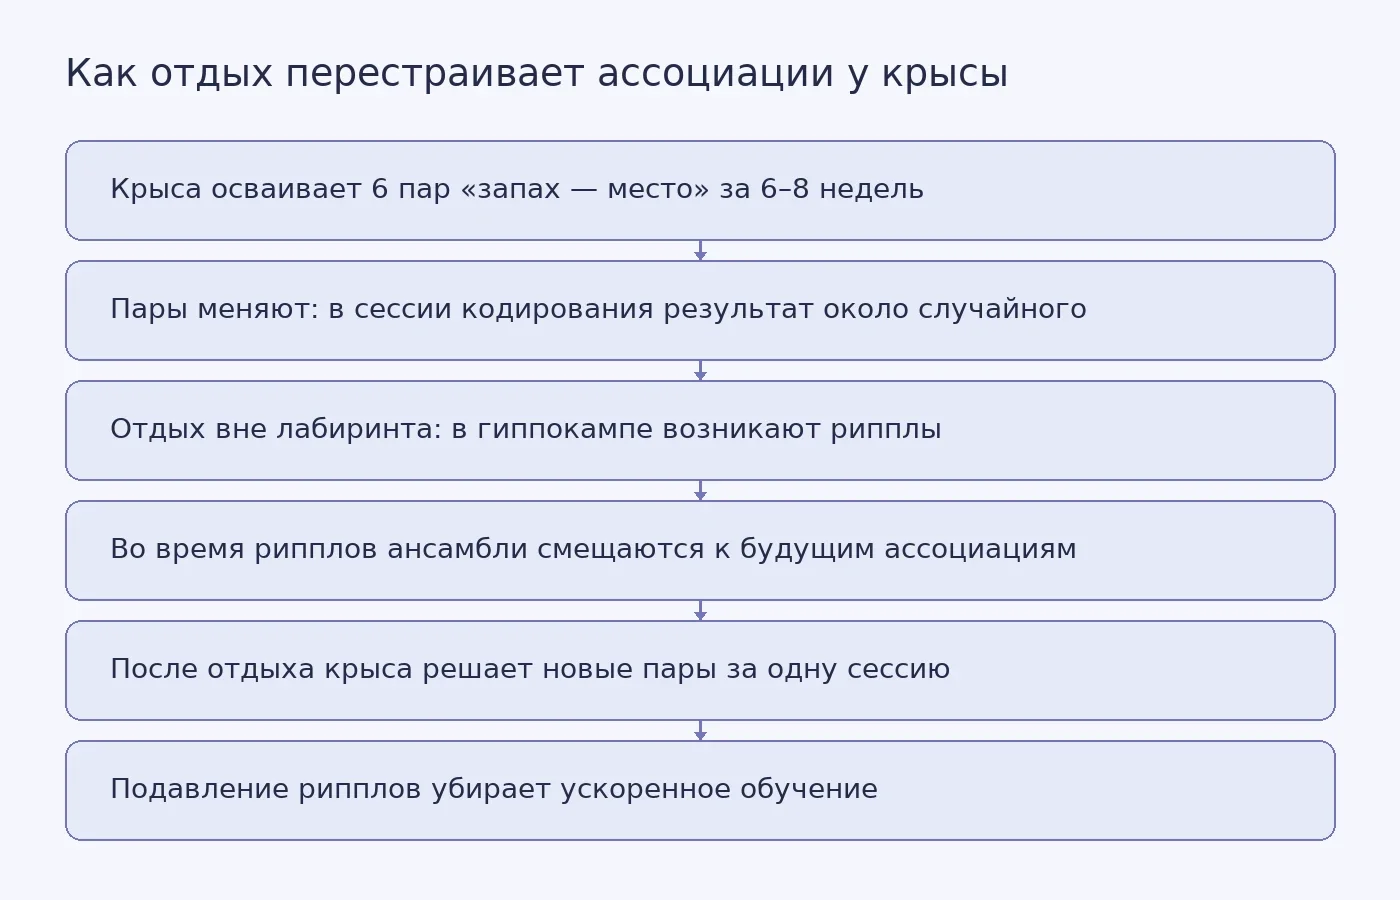
Фото: Neko412 / Pixabay


Похожие статьи
 Полезные материалы
11
мин
24.01.2024
100
Как быстро и правильно подготовиться к контрольной работе
Контрольная работа – это одна из форм самостоятельной работы, необходимой для проверки уровня знаний студента по соответствующему учебному предмету. Чаще все, именно от качества написания контрольной работы зависит итоговая оценка по определенной дисциплине. Поэтому, чтобы снизить уро
 Полезные материалы
13
мин
03.10.2026
Когда узкий список инструментов помогает ИИ-агенту выбирать точнее
Пользователь просит ИИ-агента определить, какие устройства сейчас находятся в корпоративной сети. Роутер не находит подходящего раздела и не передаёт модели ни одного инструмента. Агент не сообщает об ограничении, а пишет: «Выполняю сканирование сети…» Затем он описывает работу, которой в действител
 Полезные материалы
16
мин
09.10.2026
СИОЗС и иммунотерапия рака: что показало сравнение с бензодиазепинами и где предел вывода
В электронной медицинской карте пациента, который начинает иммунотерапию рака, есть строка, к которой онколог обычно не возвращается: назначение антидепрессанта. Депрессия и тревожные расстройства затрагивают, по оценкам, приведённым в статье, 20–40% людей с опухолями, получающих ингибиторы контроль
 Полезные материалы
9
мин
05.10.2026
Снимок мозга и антидепрессант: что показало небольшое исследование коры
Представьте, что перед началом лечения можно было бы сделать структурную МРТ и по извилинам коры сказать, кому вортиоксетин поможет сильнее. Именно такую возможность проверяла группа исследователей из пекинской больницы Хуэйлунгуань. Результат получился двойственным: часть связей между строением кор
 Полезные материалы
16
мин
04.10.2026
Как выбрать сигнал для вызова дежурного, а не просто настроить пороги
Диск заполнен на 51%, и мониторинг будит дежурного. Но свободного места хватит еще на месяц. В другом сервисе мониторинг собирает тысячи инфраструктурных метрик, но не замечает, что пользователи перестали оплачивать заказы.С этого несовпадения технического состояния и пользовательского результата на
 Полезные материалы
15
мин
26.02.2026
1
Как адаптировать учебный график к региональным условиям
Как адаптировать учебный график к региональным условиям Чтобы улучшить успеваемость студентов при поступлении в иногородний вуз, преподавателям потребуется ответственно подойти к адаптации учебного графика к региональным условиям. В этом материале мы расскажем о том, в чем важность адаптации р
Последние новости и статьи
Полезные материалы
16
мин
09.10.2026
СИОЗС и иммунотерапия рака: что показало сравнение с бензодиазепинами и где предел вывода
В электронной медицинской карте пациента, который начинает иммунотерапию рака, есть строка, к которой онколог обычно не возвращается: назначение антидепрессанта. Депрессия и тревожные расстройства затрагивают, по оценкам, приведённым в статье, 20–40% людей с опухолями, получающих ингибиторы контроль
 Полезные материалы
7
мин
09.10.2026
Родительское выгорание и враждебное воспитание: что известно о связи
Истощение, дистанция с ребёнком, ощущение, что уже не получается воспитывать так, как хотелось бы. Так Wendy L. Patrick пересказывает определение родительского выгорания, использованное в работе Katherine M. Ryan и коллег. Но доступный рассказ об исследовании опубликован не в научном журнале, а в бл
 Полезные материалы
9
мин
09.10.2026
CAR T-клетки при аутоиммунных заболеваниях: ремиссия ещё не означает излечение
В среднем через 110 дней после CAR T-терапии у пяти пациентов с тяжёлой волчанкой начали возвращаться B-клетки. Болезнь при этом оставалась в ремиссии в течение доступного наблюдения. Это наблюдение поднимает важный вопрос: почему восстановление клеток, связанных с аутоиммунной атакой, не обязательн
 Наука
2
мин
08.10.2026
Больше шагов связали с меньшей вероятностью обострений ХОБЛ
У людей с хронической обструктивной болезнью лёгких (ХОБЛ), которые проходили больше шагов, реже отмечали обострения. Эта связь сохранялась при разных уровнях загрязнения воздуха по месту жительства. О результатах исследования 5 октября 2026 года сообщила Европейская респираторная ассоциация. В рабо
 Наука
3
мин
08.10.2026
Нейросеть нашла 76 кандидатов в гравитационные линзы, MUSE подтвердил 70
Международная группа астрономов подтвердила 70 гравитационных линз из 76 кандидатов, найденных алгоритмом машинного обучения на снимках DESI Legacy Imaging Surveys. Об этом 8 октября 2026 года сообщил NSF NOIRLab. Для проверки учёные использовали спектрограф MUSE на Очень большом телескопе Европейск
 Наука
4
мин
08.10.2026
Связь вечернего хронотипа с пенсией по инвалидности ослабла после учёта здоровья
В финском исследовании у людей с вечерним хронотипом чаще назначали пенсию по инвалидности, чем у людей с утренним. До учёта других факторов частота назначения была примерно на 70% выше. Но после поправок на здоровье, образ жизни и рабочий график разница стала небольшой и статистически незначимой. Р