


Содержание статьи
Рефераты
07.11.2026
07.11.2026
11
мин
Мышь бежит по лабиринту, сворачивает в нужный коридор и спустя недели снова находит короткий путь. Обычно такую задачу связывают с гиппокампом, областью мозга, участвующей в пространственной памяти. Но два независимых препринта, опубликованных на bioRxiv в сентябре 2026 года, показывают более сложную картину.
В одном исследовании часть мышей освоила сложный лабиринт, хотя во время развития у них не сформировались гиппокамп и большая часть неокортекса. В другом исследовании пространственно связанная активность обнаруживалась во всех изученных областях мозга обычных мышей.
Это не доказывает, что гиппокамп необязателен. Работы отвечают на разные вопросы: может ли животное справиться с конкретной задачей при врождённом отсутствии этих структур и где в мозге регистрируется сигнал, связанный с положением. Ни одна из них напрямую не проверяет, что произойдёт при временном отключении гиппокампа у нормально развившейся мыши.
Два эксперимента, два уровня доказательств
Jieyu Zheng, Rogério Guimarães, Zeynep Turan и коллеги, включая Markus Meister, использовали перестраиваемый двухслойный лабиринт Manhattan Maze. Мыши перемещались между двумя водными пунктами по сети коридоров. Исследователи меняли схему соединений, сохраняя физическое расположение арены. Это позволяло проверить, запоминают ли животные один маршрут или переносят навык на новые конфигурации.
Сравнение провели с мышами, у которых из-за мутации Pals1 во время развития не сформировались гиппокамп и большая часть неокортекса. В основном анализе участвовали четыре успешно обучившиеся мутантные мыши и 27 контрольных животных. Сначала мутантные мыши исследовали лабиринт менее эффективно: дольше перемещались, чаще возвращались назад и позднее находили первые награды. После нескольких наград скорость прохождения и число ошибок приблизились к контрольным показателям.
Успешно обучившиеся мыши сохраняли маршрут после перерывов от одной ночи до нескольких недель и переносили часть навыка на новые схемы. Авторы заключили, что быстрое пространственное обучение в этой задаче не требует строгого участия гиппокампальных или неокортикальных цепей. Это вывод о конкретной задаче и конкретной группе животных, а не утверждение о ненужности этих структур вообще.
Во втором препринте Enny H. van Beest, Bex Terry, George Booth, Kenneth D. Harris и Matteo Carandini изучали обычных мышей с фиксированной головой. Животные бежали по колесу в линейном виртуальном коридоре. Его две половины выглядели одинаково, поэтому положение нельзя было определить по одному очевидному зрительному ориентиру. Исследователи зарегистрировали активность более 20 000 нейронов в коре, гиппокампальной формации, полосатом теле, таламусе и среднем мозге.
Согласно аннотации препринта, положение кодировалось в каждой исследованной области. По активности нейронов можно было предсказывать, где находится мышь. Гиппокампальная формация описывала коридор немного равномернее, чем другие области, но зрительная кора кодировала положение точнее. При этом активность многих нейронов зависела от скорости бега, а часть сигнала была связана с наградой.
Для этого препринта в предоставленных материалах проверены страница bioRxiv, аннотация и метаданные. На странице также доступны ссылки на полный HTML-текст и PDF, однако детали протокола, выборки и статистического анализа в этом обзоре независимо не оценивались. Поэтому выводы о втором исследовании ограничены тем, что прямо сообщено в аннотации.
Что значит «информация есть»
Декодирование показывает, можно ли восстановить положение животного по активности выбранной области мозга. Но оно не отвечает на другой вопрос: использует ли мозг этот сигнал для навигации и что произойдёт, если его отключить.
В редакционном разборе The Transmitter Kevin Mitchell отмечает, что исследователь может декодировать местоположение по активности разных участков мозга, но это ещё не доказывает использование сигнала как пространственного представления. Возможно, гиппокамп передаёт информацию другим областям, где она участвует в управлении поведением. Одних записей активности недостаточно, чтобы различить эти варианты.
Эксперимент с виртуальным коридором также ограничивает перенос результата. Мыши двигались в одном измерении, а их головы оставались неподвижными. При свободном перемещении в двумерном пространстве возникают вестибулярные сигналы, которых здесь не было. Поэтому такая схема может недооценивать преимущества гиппокампальной формации в более сложной среде.
Здесь полезно различать восстановление сигнала и доказательство его причинной роли. Похожая оговорка нужна и в исследованиях, где по снимкам мозга пытаются восстановить увиденное: восстановление сигнала не означает прямого чтения содержимого сознания.
Почему мыши без гиппокампа не решают старый спор
Результат первой работы выглядит неожиданно на фоне классического исследования Morris, Garrud, Rawlins и O'Keefe 1982 года. Повреждение гиппокампа у взрослых крыс приводило к выраженному и длительному нарушению поиска скрытой цели. Но эти эксперименты и работа Zheng с коллегами проверяют разные условия.
В классическом опыте гиппокамп повреждали у уже развившегося животного. Мыши с мутацией Pals1 изначально формировались без гиппокампа и большей части неокортекса. Их оставшиеся цепи могли перестроиться в ходе развития. Такой мозг нельзя приравнять к мозгу обычной мыши, у которой внезапно отключили одну структуру.
Есть и ограничение выборки. Всего тестировали 18 мутантных животных. Простую конфигурацию с помощью освоили все 18, а более сложную Mask A, 9 из 16. В основном сравнении участвовали только четыре мутантные мыши, достигшие критерия обучения. Поэтому результат относится к успешно обучившейся подгруппе, а не ко всем животным с этой мутацией.
В начале этим четырём мышам требовалось примерно в 2,4 раза больше времени, чтобы получить первые четыре награды. Они чаще совершали короткие повторные вылазки и сканировали один коридор туда и обратно. Позднее их показатели сближались с контрольными. Это допускает интерпретацию, что гиппокамп и кора особенно важны для эффективного исследования новой среды и быстрого построения её структуры, но сам препринт не устанавливает такую функцию как единственное объяснение.
Распределённый сигнал не означает равные функции
Результаты можно понять, если разделить три вопроса: есть ли сигнал, используется ли он мозгом и необходима ли для поведения конкретная область.
Сигнал о положении может возникать во многих областях, потому что они получают общие зрительные, двигательные, сенсорные или связанные с мотивацией входы. Несколько датчиков могут позволять определить координаты объекта, но это не означает, что каждый датчик строит карту или управляет решением. Один сигнал может помогать отслеживать движение, другой связывать положение с наградой, третий участвовать в построении пространственной структуры.
В препринте van Beest и коллег гиппокампальная формация описывала положение равномернее, а зрительная кора точнее. Это не отменяет распределённого кодирования, но показывает, что наличие сигнала в разных областях не означает одинаковой функции.
То же относится к поведенческому результату. Мышь может пройти конкретный лабиринт без нормально сформированного гиппокампа, но это не доказывает, что её мозг использует тот же алгоритм, что мозг обычной мыши.
Как проверить необходимость гиппокампа
Более прямой тест должен временно подавить активность гиппокампа у нормально развившихся мышей и проверить, какие элементы пространственной памяти сохранятся. Такой опыт различил бы две гипотезы: другие области могут самостоятельно поддерживать навигацию, либо они получают пространственную информацию от гиппокампа и используют её как входной сигнал.
Понадобятся не только записи активности, но и вмешательства, меняющие её. Важно проверить свободное движение в двумерной среде, повороты головы, навигацию без зрительных ориентиров, поиск скрытой цели и обучение при временном отключении конкретной области. Одномерный виртуальный коридор и мыши с изменённым развитием мозга дают полезные подсказки, но не заменяют такие проверки.
Итог
Два препринта расширяют представление о пространственной навигации в разных направлениях. Часть мышей с врождённо отсутствующими гиппокампом и большей частью неокортекса смогла освоить маршрут, сохранить его и перенести часть навыка на другие конфигурации. У обычных мышей пространственно связанная активность обнаруживалась во всех изученных областях мозга.
Пока это не показывает, что гиппокамп и кора необязательны для обычной мыши. На первый результат влияют особенности развития и малый размер успешно обучившейся подгруппы. Второй показывает, что пространственный сигнал можно декодировать, но не устанавливает его причинную роль; в предоставленных материалах для этого обзора проверены аннотация и метаданные, а детали полного текста не оценивались независимо. Главная проверка ещё впереди: временно отключить гиппокамп у нормально развившейся мыши и выяснить, какие элементы навигации при этом сохранятся.
Источники
- Zheng J., Guimarães R., Turan Z. et al. Rapid spatial cognition in mice, with and without neocortex and hippocampus. bioRxiv, версия v2, 2026. Препринт, не прошедший рецензирование. DOI: 10.64898/2026.08.30.747945.
- van Beest E. H., Terry B., Booth G., Harris K. D., Carandini M. Brainwide representation of navigation. bioRxiv, 2026. Препринт, не прошедший рецензирование. В этом обзоре проверены аннотация и метаданные; полный текст и детали анализа независимо не оценивались. DOI: 10.64898/2026.08.29.747979.
- Mesa N. Brain computes spatial location outside hippocampus. The Transmitter, 5 ноября 2026 года. Редакционный материал, не первичное исследование: страница публикации.
- Morris R. G. M., Garrud P., Rawlins J. N. P., O'Keefe J. Place navigation impaired in rats with hippocampal lesions. Nature, 1982;297:681–683. Рецензированная статья. DOI: 10.1038/297681a0.
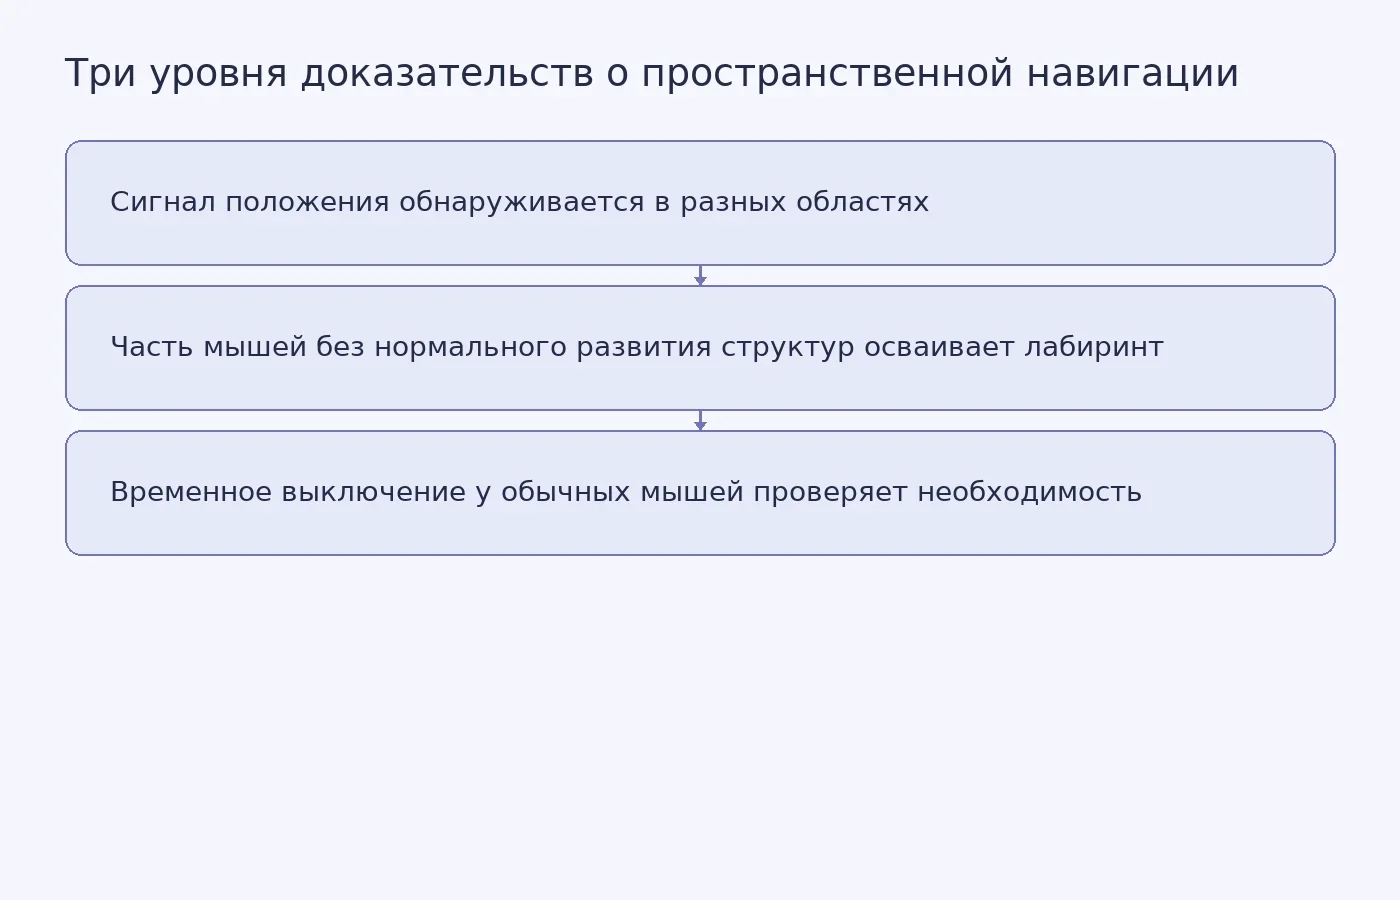
Фото: Soulful Pizza / Pexels


Похожие статьи
 Рефераты
6
мин
14.10.2026
Нумерация страниц в реферате в Word: как убрать номер с титульного листа
В Word можно скрыть номер на титульном листе, не исключая эту страницу из общего счёта. Поэтому следующая страница может отображаться как «2». Если на первой странице основного текста по методичке нужна цифра 1, настройте начальный номер отдельно. А когда перед основным текстом есть содержание, для
 Рефераты
8
мин
23.10.2026
Оформление реферата в 2027 году: требования, ГОСТ и образец
У двух рефератов по одному предмету может быть похожая структура, но разные поля, шрифт и оформление ссылок. Обычно эти параметры задают преподаватель и образовательная организация. Поэтому сначала найдите методичку или образец, по которому будут проверять именно вашу работу, и только потом меняйте
 Рефераты
8
мин
27.10.2026
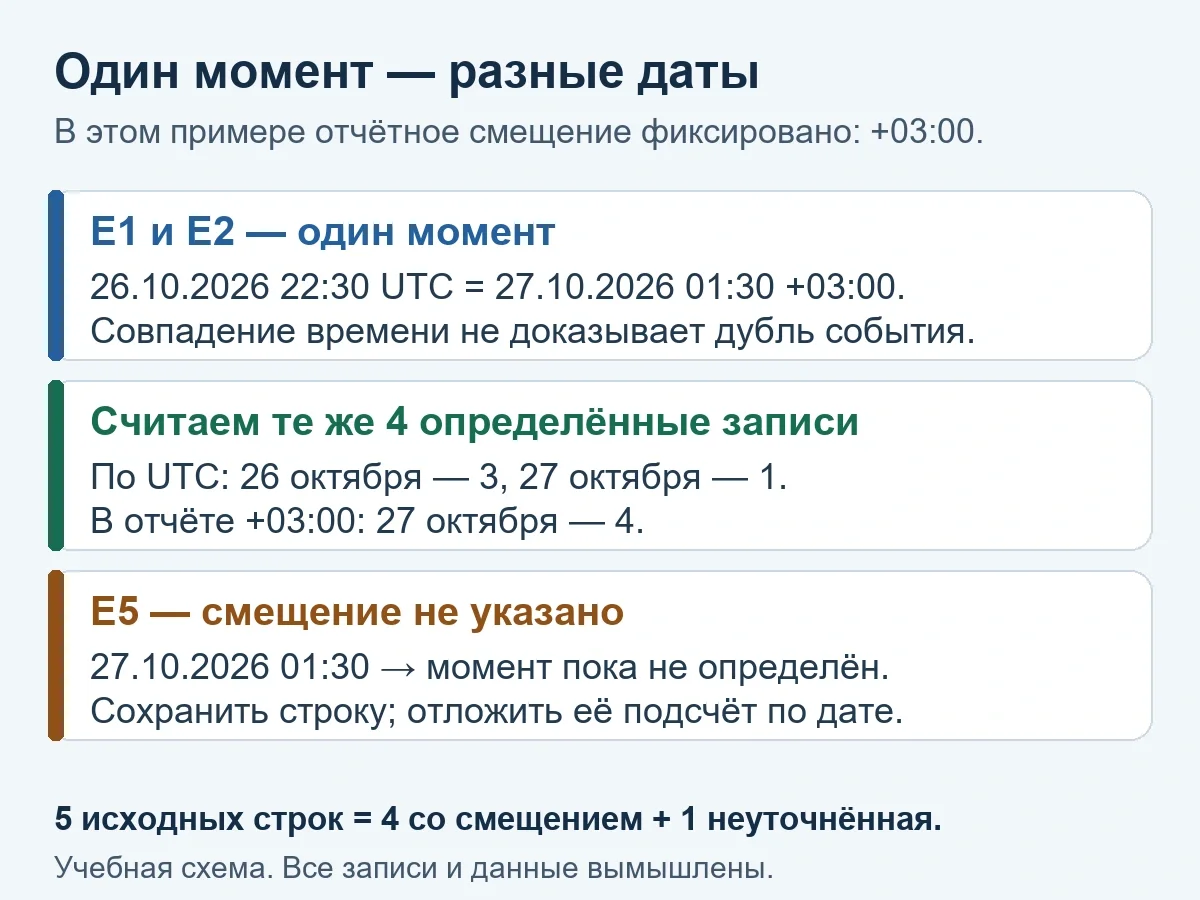
Как сверить временные метки с разными смещениями UTC перед подсчётом по дням
В файле пять временных меток: четыре со смещением UTC и одна без него. Нужно посчитать записи по дням в едином отчётном времени. Даты в исходных строках сравнивать напрямую нельзя: один момент может иметь разные календарные даты при разных смещениях. Все записи и обстоятельства этого примера вымышле
 Рефераты
18
мин
02.11.2026
Мой любимый PowerMac — это Nintendo Wii: какие допущения Mac OS пришлось обойти
Классическая Mac OS считает настоящий PowerMac устроенным примерно так: есть шина PCI, а за ней, начиная с адреса 0x8000_0000, лежит пространство ввода-вывода, отображённое в память. На плате обязательно присутствует микроконтроллер ADB и управления питанием. Контроллер прерываний работает в legacy-
 Рефераты
12
мин
04.11.2026
Топология света на оптоволокне: что защищает сигнал, а что пока только проверяют
На поверхности тонкого кварцевого волокна лазером создают локальные изменения эффективного радиуса. Каждое такое место работает как микрорезонатор для света, обходящего волокно по окружности. В работе 2026 года из 21 такого резонатора собрали одномерную цепочку с двумя разными типами связи. Это не п
 Рефераты
19
мин
06.11.2026
Сознание без прямого теста: что показали три проверки двух главных теорий
Человеку, который после тяжёлой травмы мозга не открывает глаза, когда к нему обращаются, и не отвечает на вопросы, к голове подводят катушку. Короткий магнитный импульс вызывает в коре ответ, и электроды на черепе одновременно записывают его форму: распространяется ли отклик по разным областям, ост
Последние новости и статьи
 Научные статьи
21
мин
07.11.2026
Монографии о пионерских лагерях СССР: как выбрать литературу
Монографии о пионерских лагерях СССР стоит выбирать под конкретный вопрос: организация отдыха, воспитание, архитектура или воспоминания детей требуют разных источников. Если вы готовите собственное исследование, цена на монографию обсуждается применительно к вашей рукописи и заданию. Ниже — маршрут
 Вопросы студентов
8
мин
07.11.2026
Кому оставить трудную часть учёбы, когда ИИ делает остальное
За минуту студент может получить от ИИ аккуратное объяснение, план эссе и набор формул. Но сможет ли он через неделю сам вспомнить нужный принцип и понять, когда его применять? Разрыв между готовым ответом и действительно освоенным знанием помогает решить, какие части работы можно автоматизировать,
 Диссертации по темам
12
мин
07.11.2026
Одомашненная кошка и одичавшая популяция: что показывают генетика и данные о смертности
Представим мысленный эксперимент: завтра из города исчезают люди, кормушки, тёплые подвалы и ветеринарные клиники. Какие кошки останутся через год? На такой вопрос легко ответить точным числом: например, «погибнет 90–95%». Но научные статьи, которыми иногда подкрепляют эту цифру, не изучали массовое
 Наука
3
мин
06.11.2026
Treellis показывает пользователю устройство 3D-модели во время работы с ИИ
Исследовательская группа Университета Сиднея разработала Treellis, браузерный интерфейс для совместного создания 3D-моделей с искусственным интеллектом. О системе 5 ноября 2026 года сообщило TechXplore со ссылкой на университет. В отличие от инструментов, которые по текстовому запросу сразу выдают г
 Наука
3
мин
06.11.2026
Одних электронных пар недостаточно для сверхпроводимости при комнатной температуре
Исследователи из Утрехта, Лейдена и Мюнхена предложили объяснение, почему одних электронных пар недостаточно для сверхпроводимости при комнатной температуре. В работе, опубликованной в журнале Science и представленной Утрехтским университетом 6 ноября 2026 года, образование пар Купера рассматриваетс
 Наука
2
мин
06.11.2026
Микроскоп FLIM-SIM показывает мелкие структуры клетки и среду вокруг молекул
Исследователи из Университета Билефельда и Венского университета объединили два метода микроскопии в систему FLIM-SIM и испытали её на клетках рака кости человека. О результатах они сообщили в статье, опубликованной в журнале Optica в 2026 году. Система позволяет одновременно различать мелкие клеточ